친환경 전환 초기 포도원의 식물상과 연차 간 종 교체 양상: 청양・함평・담양 지역을 중심으로
Ⓒ The Korean Environmental Sciences Society. All rights reserved.
This is an Open-Access article distributed under the terms of the Creative Commons Attribution Non-Commercial License (http://creativecommons.org/licenses/by-nc/3.0) which permits unrestricted non-commercial use, distribution, and reproduction in any medium, provided the original work is properly cited.
Abstract
Baseline floristic data are required before the ecological consequences of an eco-friendly management transition can be evaluated, and species lists alone do not show whether a community is reorganized by species replacement or by species net gains and losses. We documented the flora, naturalized plants, and interannual compositional dynamics of three vineyards in Cheongyang, Hampyeong, and Damyang, Korea, all of which began their transition in 2024. Each site was surveyed twice a year in 2024 and 2025, once in June and once from mid-August to mid-September, using three 2 × 10 m quadrats placed within the same vineyard area in both years. A total of 35 quadrat surveys were conducted. We recorded 101 taxa belonging to 81 genera and 35 families. The estimated sample coverage exceeded 93% at each site, and the cumulative richness was highest in Cheongyang and lowest in Damyang. This ranking was retained after standardizing the coverage to that of the least complete sample, and the same ordering was maintained for Hill order numbers one and two, whereas the evenness values differed little among the sites. Twenty-one taxa were found at all three sites, and the compositional similarity among the sites was 0.50–0.55. Sørensen dissimilarity within each vineyard was 0.365–0.385, with species turnover accounting for 77.35–91.77% of thisdissimilarity. Among the 166 taxonomic records, perennials comprised 48.68% of the records occurring during both years and 31.11% of the records occurring during one year only. Thus, within the sampled seasonal window, the interannual compositional changes in each vineyard were dominated by species turnover rather than by nestedness. Differences in the timing of the second survey between years and the absence of conventional control vineyards limit the attribution of these changes to an eco-friendly transition.
Keywords:
Eco-friendly transition, Naturalized index, Species turnover, Vineyard1. 서 론
농경지에 발생하는 식물은 작물과 양분·수분·광을 두고 경쟁하여 생산성을 저해하는 요인인 동시에 농경지의 지피층을 형성하고 토양침식을 완화하며 절지동물과 토양미생물의 서식 기반을 제공하는 농업생태계의 핵심 구성 요소이다(Lee et al., 2017). 특히 포도원과 같은 다년생 과수원은 매년 경운과 파종이 반복되는 일년생 작물 재배지와 달리 토양 교란 빈도가 낮고 동일한 식생이 여러 해에 걸쳐 누적되므로 잡초 군락의 천이와 우점 구조가 관리 방식에 민감하게 반응한다(Mainardis et al., 2020; Hurajová et al., 2024).
농업 관리 방식 측면에서 관행으로부터 친환경 농업으로의 전환은 농경지 내 식물상을 재편하는 것으로 알려져 왔다. 유럽 및 온대 지역의 메타분석에서 유기재배 경작지의 식물 종풍부도는 관행 대비 대체로 높았으며(Bengtsson et al., 2005; Hole et al., 2005), 474개 비교쌍을 분석한 Tuck et al.(2014)에서는 경작지 식물의 종수가 유기재배에서 약 95% 더 높은 것으로 나타났다. 이러한 차이는 경관 복잡성과 같은 입지 요인에 의해 조절되기도 하지만(Roschewitz et al., 2005), 친환경적 관리는 대체로 식물 종 다양성을 높이는 방향으로 작용하는 것으로 보고되고 있다(Bengtsson et al., 2005; Tuck et al., 2014; Winter et al., 2018). 다만 이들 연구는 관행 대조구와의 동시 비교를 전제로 한 것이어서 대조구를 설정하기 어려운 개별 전환 농가에서 조성이 실제로 어떤 경로를 밟는지에 대해서는 직접적인 정보를 주지 못한다.
제초제를 사용하지 않거나 토양 교란을 줄이는 관리체계에서는 잡초 군락의 생활형 구성이 달라질 수 있다(Albrecht, 2005). 경운 등의 물리적 교란은 다년생의 지하경과 뿌리에 영향을 주는 반면, 예초 관리에서는 지하 저장기관을 가진 식물이 다시 생장할 수 있어 다년생의 상대적 비중이 높아질 수 있다(Mainardis et al., 2020). 또한 장기간의 경운체계 비교에서 토양 교란이 적은 조건에서 다년생을 포함한 군락 구성의 변화가 보고되었다(Zanin et al., 1997). 다만 이러한 반응은 관리 방식과 지속 기간, 입지 조건에 따라 달라질 수 있으므로 친환경 전환기 포도원에서 생활형 구성이 실제로 어떻게 변하는지는 연차 자료를 통해 확인할 필요가 있다. 귀화식물의 발생 정도는 귀화율과 도시화지수로 정량화되어 특정 지역의 식물상 현황을 기술하는 지표로 널리 활용된다(Yim and Jeon, 1980; Park, 2009). 귀화식물 현황을 포함한 전환기의 식물상 모니터링은 이후 변화를 비교하기 위한 중요한 기준이 된다.
국내 과수원 식물상은 51과 322종으로 보고되었고 지역 단위 조사가 이루어져 왔으나(Park et al., 2005; Lee et al., 2016), 대부분 관행 재배지 또는 단년도 조사에 한정되어 친환경 전환 과정에 있는 과수원의 식물상과 귀화식물 등을 목록학적으로 정리한 사례는 미흡한 실정이다. 따라서 전환 초기에 식물상과 종 조성 변화를 기록하는 것은 이후 장기모니터링에서 친환경 전환 과정에서 나타나는 생태적 변화를 비교 및 평가하기 위한 기초자료로 중요하다.
한편 식물상 목록만으로는 조성 변화의 성격을 판별하기 어렵다. 관측된 종수는 표본 노력에 의존하므로 조사 지점 간 종풍부도를 직접 비교하려면 표본 충실도의 검증이 선행되어야 하며(Chao and Jost, 2012), 연차 간 종수가 같더라도 구성 종이 모두 교체되었을 수 있고 종수가 늘어도 기존 종에 몇 종이 더해진 것에 불과할 수 있다. Baselga(2010)는 두 군집 간 총 베타다양성을 종 교체와 종 득실에 따른 포섭으로 분해하는 틀을 제시하였으며 이 분해는 조성 변화가 구성 종의 치환인지 단순 증감인지를 구별하게 해 준다.
본 연구는 친환경으로 전환 중인 청양·함평·담양 3개 지역 포도원을 대상으로 2024–2025년 출현 식물상을 조사하여 분류군 조성과 과별 구성, 귀화식물 현황과 귀화율 및 도시화지수, 생태계교란식물, 지역 간 출현종 조성 유사도를 종합적으로 분석하였다. 또한 표본 충실도를 추정하여 조사완전성을 검토하고 조사지별 연차 간 Sørensen 비유사도를 종 교체와 포섭으로 분해하여 전환 초기의 단기 조성 변화를 정량적으로 기술하고자 하였다. 본 연구는 친환경 전환 포도원의 초기 식생 변동을 파악하고 향후 지속가능한 농업 전략 수립을 위한 기초자료로 활용하는 데 목적을 두었다.
2. 재료 및 방법
2.1. 연구대상지
본 연구는 친환경농업으로 전환 중인 충청남도 청양(Cheongyang, CY; 유기농 전환, 노지 비가림시설), 전라남도 함평(Hampyeong, HP; 무농약 전환, 시설하우스), 전라남도 담양(Damyang, DY; 유기농 전환, 시설하우스)의 포도원 각 1개소를 대상으로 하였으며, 이하 각 조사지는 약어로 표기하였다. 조사지의 정확한 위치는 농가 정보 보호를 위하여 제시하지 않았다. 세 조사지는 모두 2024년에 친환경 인증 전환을 시작하였으므로, 2024년 조사는 전환 1년차, 2025년 조사는 전환 2년차에 해당하였다. 주 재배 품종은 함평이 샤인머스캣, 청양과 담양이 캠벨과 샤인머스캣이었다. 주변 경관 조사에서 토지이용은 청양과 함평 주변으로는 밭과 산림이, 담양은 모든 면이 논으로 둘러싸여있다. 세 조사지는 모두 제초제를 사용하지 않고 예초 위주로 지피식생을 관리하였다. 다만 농가별 예초 시기와 횟수에 대한 명확한 기록은 확보하지 못하였다.
2.2. 식생 조사 및 종 동정
식생 조사는 2024년과 2025년 두 해에 걸쳐 연 2회 수행하였다. 조사일은 2024년 6월 19일(CY), 6월 24일(HP, DY), 9월 10일(HP, DY), 9월 12일(CY)이었고, 2025년 6월 10일(HP, DY), 6월 16일(CY), 8월 14일(HP, DY), 8월 18일(CY)이었다. 연차 간 같은 회차의 조사일 차이는 1차 조사가 3–14일, 2차 조사가 25–27일이었다. 각 포도원마다 2 × 10 m (20 m2) 방형구 3개를 지정하고 두 해 모두 동일 포도원 내의 유사한 구역에서 반복 조사하였다. 방형구 내에서 작물을 제외한 모든 관속식물의 출현 여부와 피도계급을 Braun-Blanquet 방법에 따라 육안으로 조사하였다(Lee et al., 2017). 총 36회의 방형구 조사 가운데 청양 2024년 2차 조사에서 1개 방형구가 결측되어 35개 방형구 조사 자료를 분석에 사용하였다. 방형구 경계는 영구 표지로 고정하지 않았으므로 연도 간 정확한 위치 대응을 보장할 수 없으며, 위치 변동 범위도 별도로 기록하지 않았다. 따라서 방형구 자료를 연차 간 일대일로 대응되는 독립 반복으로 간주하지 않았다. 연차 간 종 조성 변화의 주 분석은 조사지별로 각 연도의 출현 목록을 누적하여 수행하였다.
출현한 식물의 학명과 국명은 국립수목원(Korea National Arboretum, KNA)이 발간한 국가표준식물목록(KNA, 2022)을 기준으로 정리하였으며 귀화식물은 한국의 귀화식물 자료(Park, 2009)를 활용하였고, 생태계교란식물은 환경부(Ministry of Environment, MOE)의 관계법령에 따른 지정 목록(MOE, 2019)을 기준으로 분류하였다. 귀화식물의 발생 정도는 귀화율(naturalized index, NI; 전체 출현 식물 종수에 대한 귀화식물 종수의 백분율)과 도시화지수(urbanization index, UI; 남한 전체 귀화식물 종수에 대한 출현 귀화식물 종수의 백분율)로 산출하였다(Yim and Jeon, 1980).
2.3. 식생 데이터 분석
각 분류군의 상대적 우세는 중요치(importance value, IV)로 나타내었다. 상대빈도(relative frequency)는 조사지의 전체 표본단위 수에 대한 해당 분류군의 출현 표본단위 수의 백분율을, 상대피도(relative cover)는 조사지의 총 피도에 대한 해당 분류군 피도의 백분율을 각각 조사지와 연도별로 합이 100이 되도록 환산한 값이며, IV는 두 값의 평균으로 산출하였다. 식물 종별 피도는 Braun-Blanquet(1964)의 피도-우점도 계급을 적용하여 기록하였으며, 본 조사에서는 r, +, 1(1–5%), 2(5–25%), 3(25–50%), 4(50–75%), 5(75–100%)의 계급으로 구분하였다. 수치 분석에서는 각 피도계급의 피복률 범위 중앙값을 대표값으로 사용하여 1–5 계급을 각각 3.00%, 15.00%, 37.50%, 62.50%, 87.50%로 변환하였으며, 명확한 피도 범위가 정의되지 않은 r과 +에는 분석을 위해 각각 0.10%와 0.50%의 명목값을 부여하였다(van der Maarel, 1979).
지역 간 종풍부도를 비교하기에 앞서 표본 노력의 충분성을 평가하였다. 방형구와 조사회차의 조합을 하나의 표본단위로 하는 출현빈도 자료(incidence data)를 구성하고, 정확히 1개 및 2개 표본단위에서만 출현한 분류군 수를 이용하여 표본 충실도(sample coverage)와 Chao2 추정 종풍부도(Chao2 estimator)를 산출하였다(Chao, 1987; Chao and Jost, 2012). 조사에 적용된 Braun-Blanquet 피도계급은 개체수가 아닌 순서척도이므로, 개체수 기반 추정 대신 출현빈도 기반 추정을 적용하였다.
표본 충실도는 조사된 표본이 실제 군집을 어느 정도 포괄하는지 추정하는 지표로, 100%에 가까울수록 해당 표본에서 미검출 분류군의 비중이 낮음을 의미한다. 다만 본 연구의 표본단위는 세 포도원에서 시간적으로 반복 확보한 방형구 조사자료로 서로 완전히 독립인 공간 반복이 아니다. 이러한 자료구조는 표본 충실도 해석에 영향을 줄 수 있으므로, 본 연구에서는 해당 값을 각 조사지의 조사완전성을 기술하고 동일한 추정 절차에서 종풍부도 순위가 유지되는지 확인하는 보조 지표로 사용하였다. 지역 간 종풍부도는 세 조사지 가운데 추정 표본 충실도가 가장 낮은 조사지의 수준에서 희박화(rarefaction) 및 외삽(extrapolation)을 통해 표준화하여 비교하였다(Chao and Jost, 2012).
종 다양성은 Hill 수(Hill numbers)로 산출하였다(Chao et al., 2014). q = 0은 종풍부도로 모든 분류군을 동일하게 취급하고, q = 1은 Shannon 다양성의 지수 변환값으로 출현빈도에 비례하여 가중하며, q = 2는 Simpson 다양성의 역수로 우세 분류군에 더 큰 가중을 둔다. 세 값 모두 유효 분류군 수(effective number of taxa)의 단위를 가져 서로 직접 비교할 수 있다. 균등도(evenness)는 q = 1과 q = 0의 비로 나타내었으며, 이 값이 1에 가까울수록 분류군 간 출현빈도가 고르다는 것을 의미한다. 표준화 종풍부도와 Hill 수의 95% 신뢰구간은 부트스트랩(bootstrap, 1,000회) 표준오차에 1.96을 곱하여 산출하였다.
조사지 간 출현종 조성의 정량적 유사성은 Sørensen 유사도 지수(Sørensen's similarity index)로 비교하였다(Sørensen, 1948). 연차 간 종 조성 변화의 성격을 판별하기 위하여 각 조사지의 2024년과 2025년 누적 출현 목록에 대해 Sørensen 비유사도(Sørensen dissimilarity)를 산출하고 이를 종 교체 성분(turnover component)과 포섭 성분(nestedness component)으로 분해하였다(Baselga, 2010). 종 교체 성분은 두 시점 사이의 종 대체에 해당하는 부분을, 포섭 성분은 종수 차이에 수반되는 부분집합 구조를 나타내며 두 성분의 합이 총 비유사도가 된다. 베타다양성 분해의 분석단위는 조사지이며, 조사지당 하나의 연차 간 비교값을 산출하였다. 지역당 조사 포도원이 1개소이므로 조사지 간 차이에 대한 통계적 유의성 검정은 수행하지 않았다. 연차 간 조사시기 차이의 영향을 점검하기 위해, 두 연도의 조사일 차이가 상대적으로 작은 1차 조사 자료만을 조사지별로 누적하여 동일한 베타다양성 분해를 추가로 수행하였다.
연차 간 지속성과 생활형의 관계는 기술적으로 요약하였다. 기록 단위는 분류군과 조사지의 조합(taxon-site record)으로 정의하였으며, 한 분류군이 여러 조사지에 출현한 경우 각 조사지의 기록을 별도로 집계하였다. 동일 분류군이 여러 조사지에서 중복될 수 있고 조사지당 독립 농가가 1개소에 불과하므로, 지속 여부에 따른 생활형 차이는 유의성 검정 없이 다년생 및 일년생 기록의 수와 비율로 기술하였다.
모든 분석은 R 4.5.3 (R Core Team, 2026)에서 iNEXT (Hsieh et al., 2016) 및 betapart (Baselga and Orme, 2012) 패키지를 이용하여 수행하였다.
3. 결과 및 고찰
3.1. 식물상 조성
3개 지역 포도원에서 2024–2025년 두 해에 걸쳐 출현한 식물은 총 35과 81속 91종 6변종 4아종 101분류군으로 확인되었다(Table 1). 연차 간 누적 분류군 수의 변화 방향은 조사지마다 달랐다. CY는 감소한 반면 HP와 DY는 증가하여, 전환 초기 식물상의 변동이 일률적인 방향으로 나타나지 않았다(Table 1). 그러나 누적 분류군 수의 순위는 두 해 모두 CY, HP, DY의 순서를 유지하였다.

Number of vascular plant taxa recorded in the transitional vineyards by site and year
과별로는 국화과와 벼과가 각각 20종과 18종으로 전체 식물상의 37.62%를 차지하여 뚜렷이 우세하였고, 나머지 33개 과는 5종 이하로 구성되었다(Fig. 1). 두 과의 우점은 국내 농경지 및 과수원 식물상에서 반복적으로 확인되는 일년생 초본 우점 경향(Kim et al., 2020)과 일치하였다.
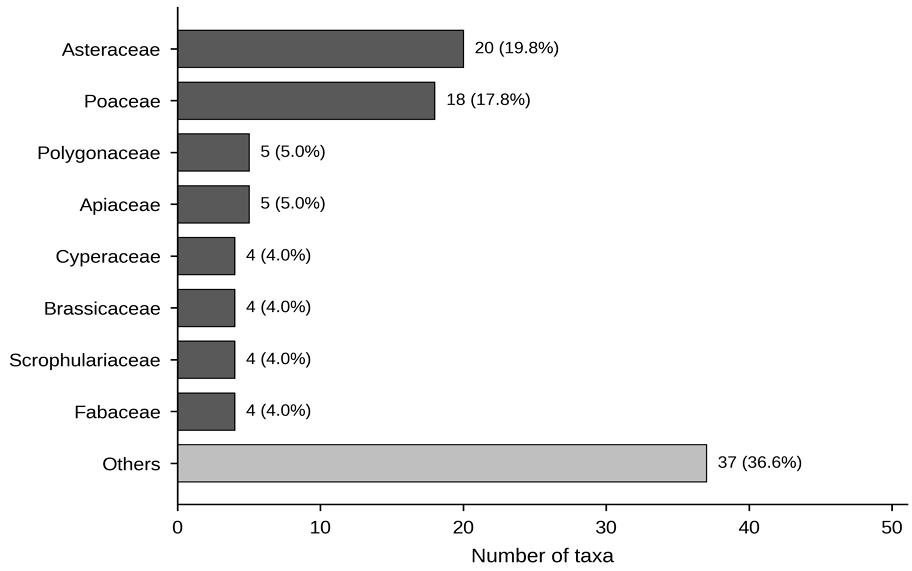
Family composition of the vascular flora recorded in the three transitional vineyards during 2024 and 2025. The eight most speciose families are shown separately and the remaining 27 families are pooled as others. Bars give the number of taxa, with the percentage of the 101 taxa recorded in parentheses.
지역별, 연도별 중요치 상위 분류군은 조사지에 따라 달랐다(Table 2). CY에서는 뱀딸기(Duchesnea indica)가 두 해 모두 최상위였으나 중요치가 2024년 10.46에서 2025년 36.75로 크게 높아졌고, 2024년 상위였던 바랭이(8.55), 쑥(7.65), 토끼풀(7.24)은 2025년 각각 1.40, 5.67, 2.33으로 낮아졌다. HP에서는 2024년 피막이(17.12)와 괭이밥(13.93)이 우세하였으나 2025년에는 쇠별꽃이 6.42에서 23.32로 상승하여 최상위가 되었다. DY에서는 2024년 뱀딸기(16.97), 바랭이(16.09), 봄여뀌(13.92), 괭이밥(12.75)이 비슷한 수준으로 우세하였던 반면, 2025년에는 개여뀌가 32.61로 단독 우점하였다.
Importance values of the vascular plants recorded in the three transitional vineyards by site and year
조사지를 통틀어 바랭이(Digitaria ciliaris)는 CY 2025년을 제외한 5개 조사지·연도 조합에서 모두 상위 4위 이내에 포함되어 가장 광역적으로 우세하였고, 괭이밥(Oxalis corniculata)은 HP와 DY에서 두 해 모두 상위 4위 이내를 유지하였다. 반면 최상위 분류군은 세 조사지 모두 연차 간에 순위 또는 중요치가 크게 변하였으며, 2025년에는 각 조사지에서 특정 분류군으로 중요치가 집중되는 양상이 공통적으로 나타났다. 다만 집중을 주도한 분류군은 CY의 뱀딸기, HP의 쇠별꽃, DY의 개여뀌로 서로 달랐다.
3.2. 표본 충실도와 종 다양성
지역 간 종풍부도를 비교하기에 앞서 추정 표본 충실도를 확인하였다. 두 연도 자료를 통합한 표본 충실도는 세 조사지 모두 93%를 상회하였다(Table 3). 표본 충실도가 가장 낮은 CY의 수준에서 표준화한 종풍부도는 관측값과 동일하게 CY, HP, DY의 순위를 보였다(Fig. 2). 다만 표본 충실도 표준화는 조사완전성의 차이를 보정하는 절차이며, 지역당 조사 농가가 1개소이고 지역, 시설 형태, 주변 토지이용이 서로 교락되어 있으므로 이러한 순위를 지역의 고유한 생태적 차이 또는 특정 관리요인의 효과로 해석할 수는 없다. 표준화 종풍부도의 95% 신뢰구간은 DY와 HP 사이에서는 중첩되지 않았고 CY와 HP 사이에서는 일부 중첩되었다. Hill 수를 차수별로 산출한 결과에서도 세 조사지의 순위는 q = 0, 1, 2 모두에서 동일하였다(Table 3). 반면 균등도 지표인 q = 1과 q = 0의 비는 통합된 자료에서 CY 0.73, HP 0.79, DY 0.74로 나타났다. 연도별로는 세 조사지 모두 2025년의 추정 표본 충실도가 2024년보다 높았으나, 이러한 값은 동일 포도원에서 반복된 조사자료에 근거하므로 연도 간 차이로 해석되지 않았다(Table 3).
Sample coverage, Chao2 richness estimate, and Hill numbers of the vascular flora in the three transitional vineyards
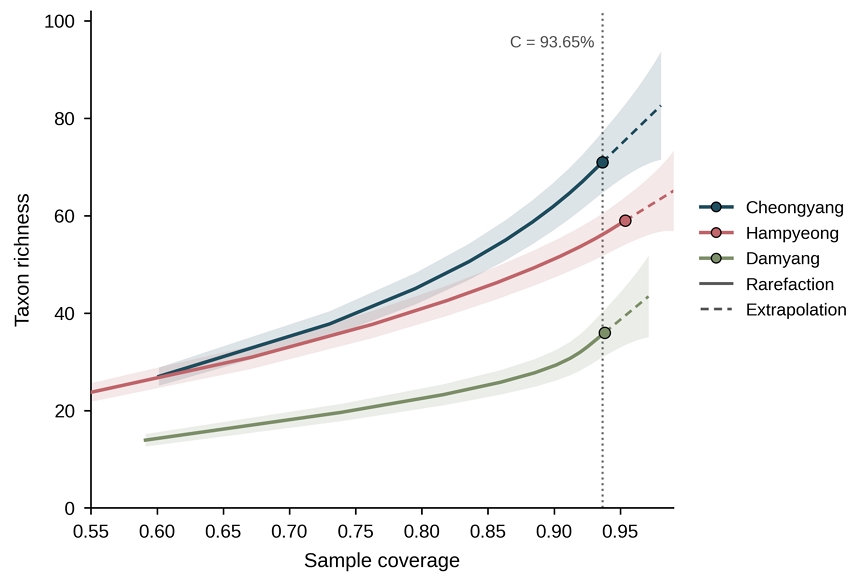
Coverage-based rarefaction (solid lines) and extrapolation (dashed lines) curves of taxon richness for the three transitional vineyards, computed from quadrat-level incidence data. Shaded bands are 95% confidence intervals from 1,000 bootstrap replicates. Filled symbols mark the observed endpoint of each site, and the dotted vertical line marks the sample coverage of the least complete site, at which richness was standardized. CY, Cheongyang; HP, Hampyeong; DY, Damyang.
한편 추정 표본 충실도가 93%를 넘었음에도 Chao2 추정치는 관측 종수를 상회하였으며, CY에서는 단 1개 표본단위에서만 확인된 분류군이 21개였다(Table 3). 이는 조사자료에 저빈도 분류군이 상당수 포함되어 있음을 보여준다. 다만 동일 포도원에서 반복된 표본단위 사이의 의존성이 표본 충실도와 Chao2 추정에 미치는 영향의 방향과 크기를 본 자료만으로 판단하기는 어렵기 때문에, 미검출 분류군의 절대적 수를 추론하기보다는 조사지별 조사완전성을 기술하는 보조 결과로 해석하였다.
3.3. 귀화식물과 생태계교란식물
전체 조사에서 확인된 귀화식물은 13과 29종이었으며, 과별로는 국화과가 10종으로 가장 많았다(Table 2). 도입 시기별로는 신귀화식물이 24종, 사전귀화식물이 5종이었다(Park, 2009). 전체 출현 101분류군에 대한 귀화율은 28.71%였으며, 남한 귀화식물 총 종수를 321종으로 할 때 도시화지수는 9.03%로 산출되었다.
본 조사의 귀화율은 전국 밭 경작지를 대상으로 한 조사의 18.40%(Kim et al., 2020)보다 높은 수준이었다. 다만 두 조사는 표본 단위와 조사 기간이 달라 직접 비교에는 한계가 있으며, 본 연구의 값은 2년간 누적 목록에 기반한 것이므로 단년도 조사보다 구조적으로 높게 산출된다는 점을 함께 고려할 필요가 있다. 국화과 귀화종의 우세는 국내 밭과 과수원 외래식물에서 국화과가 우점한다는 기존 보고(Park et al., 2003; Yang et al., 2017)와 일치하며, 괭이밥, 서양민들레, 미국자리공 등 다년생 귀화종이 3개 지역에 공통적으로 분포하였다. 다만 전환 이전의 식물상 자료와 관행재배 대조구가 없으므로, 이러한 분포가 친환경 관리에 따른 정착과 확산의 결과인지는 본 연구에서 판단할 수 없다. 농경지 내 외래 침입식물의 분포가 비농경지와 크게 다르지 않다는 보고(Kim et al., 2017)와 외래·침입식물의 출현이 시간에 따라 증가한다는 보고(Kim and No, 2023)를 함께 고려하면, 전환기 포도원에서의 귀화종 관리는 작물의 수량 보호뿐 아니라 주변 생태계 관리 측면에서도 중요한 의미를 가진다.
생태계교란식물로는 자생종이면서 2019년 지정·고시된 환삼덩굴(Humulus scandens (Lour.) Merr.) 1종이 확인되었다. 환삼덩굴은 전환 2년차인 2025년 조사에서만 CY와 DY의 각 1개 방형구에서 흔적 수준으로 출현하였다(Table 2). 이는 전국 논, 밭 경작지에서 환삼덩굴을 비롯해 돼지풀, 가시박, 미국쑥부쟁이 등 9종의 생태계교란식물이 보고된 것(Kim et al., 2020)에 비하면 적은 수이나, 환삼덩굴은 빠른 피복으로 지피식물을 단순화시킬 수 있고 본 조사에서 2년차에 처음 확인되었으므로 개화 전 제거와 지속적 예찰이 필요하다고 판단되었다.
3.4. 지역 간 종 조성 차이
3개 지역에 공통으로 출현한 종은 21종이었고, 특정 지역에만 출현한 종은 CY가 32종으로 가장 많았으며 DY가 4종으로 가장 적었다(Fig. 3). 지역쌍 간 Sørensen 유사도는 0.50–0.55였으며 HP와 DY 사이에서 가장 높았다. Sørensen 유사도는 두 조사지의 종수 합에 대한 공유 분류군 수의 2배 비율이므로, 이 값 자체를 지역 고유 분류군의 단순 비율로 해석할 수는 없다. 이러한 지역 간 편차는 식물다양성이 관리 방식뿐만 아니라 주변 경관 구조와 입지조건에 의해서도 달라진다는 보고(Roschewitz et al., 2005)를 반영하는 것으로 판단된다. CY는 세 조사지 가운데 유일하게 측면이 개방된 노지 비가림 형태였고, DY는 시설재배지이면서 주변이 넓은 논 지대로 둘러싸여 있었다. 이러한 차이가 종자 유입과 식물상에 영향을 주었을 가능성은 있으나, 본 연구는 지역당 조사 농가가 1개소이고 시설 형태와 주변 경관이 지역과 교락되어 있으므로 해당 요인의 효과를 분리하여 검정할 수 없다. 따라서 주변 경관과 입지조건은 관측된 조성 차이에 대한 가능한 설명으로만 제시한다.
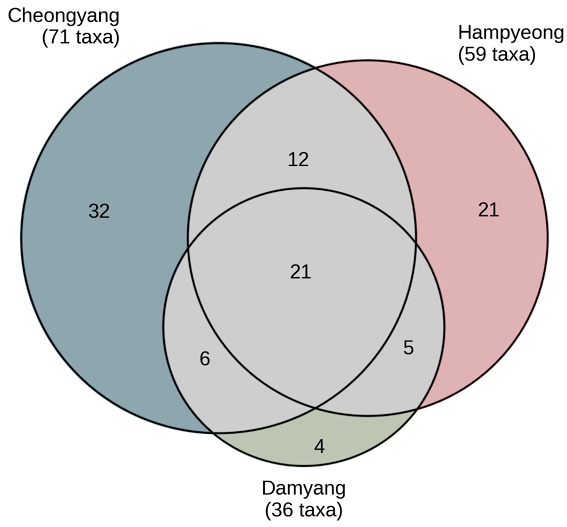
Venn diagram of vascular plant taxa shared among and exclusive to the three transitional vineyards, based on the species lists of the 2024 and 2025 surveys pooled within each site.
3개 지역 공통 21종은 강아지풀, 개망초, 개밀, 개여뀌, 괭이밥, 깨풀, 뚝새풀, 미국자리공, 바랭이, 방가지똥, 뱀딸기, 봄여뀌, 새포아풀, 서양민들레, 소리쟁이, 쑥, 유럽점나도나물, 주름잎, 큰개불알풀, 털쇠무릎, 풀솜나물이었다. 이들의 다년생 비율은 38.10%로 전체 출현 분류군의 39.60%와 유사하였고, 귀화식물 비율은 38.10%로 전체의 28.71%보다 높았다. 이 결과는 세 조사지가 일부 공통 분류군을 공유하면서도 상당수의 조사지별 출현 분류군을 함께 포함하고 있음을 보여준다.
3.5. 연차 간 종 조성 변동
조사지별 2024년과 2025년 누적 출현 목록을 비교한 총 Sørensen 비유사도는 CY 0.365, HP 0.372, DY 0.385로 유사한 범위에 있었다(Table 4). 베타다양성을 분해한 결과 세 조사지 모두에서 종 교체 성분이 포섭 성분보다 컸으며, 종 교체가 총 비유사도에서 차지한 비율은 77.35–91.77%였다(Table 4, Fig. 4). 방형구는 연차 간 정확히 대응되지 않으므로 방형구 수준의 짝지은 분해와 통계검정은 수행하지 않았다. 연차 간 조사일 차이가 3–14일로 상대적으로 작은 1차 조사 자료만을 이용한 보조 분석에서도 종 교체 비율은 CY 76.92%, HP 100.00%, DY 64.31%로 세 조사지 모두 종 교체 성분이 포섭 성분보다 컸다. 따라서 종 교체 우세라는 관측 패턴은 2차 조사 자료를 제외했을 때에도 확인되었다. 다만 1차 조사 역시 연차 간 조사일이 완전히 동일하지 않았고 연 2회 조사만 수행하였으므로, 조사시기와 계절적 검출 차이가 연차 간 비유사도에 미친 영향을 완전히 배제할 수는 없다.
Partitioning of interannual Sørensen dissimilarity between 2024 and 2025 within each transitional vineyard
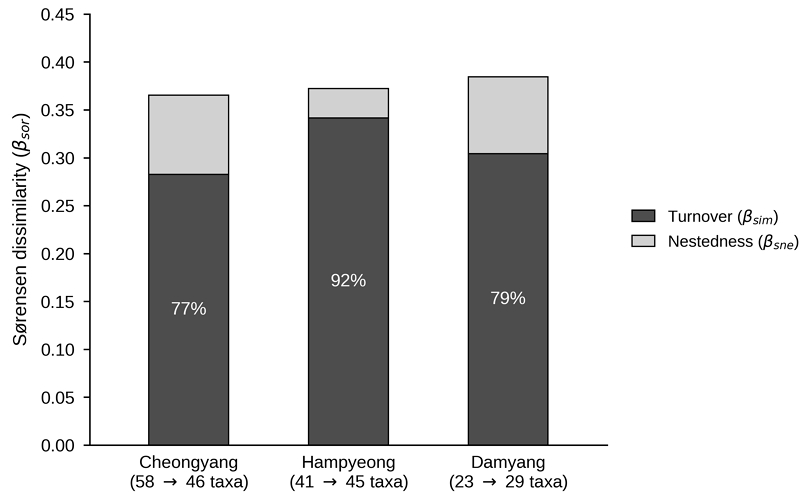
Partitioning of interannual Sørensen dissimilarity into turnover and nestedness components within each transitional vineyard, based on the species lists pooled within each site and year. Bar height is the total dissimilarity and the percentage within the dark segment is the proportion accounted for by turnover. Values below each site name are the cumulative numbers of taxa recorded in 2024 and 2025. Component values are given in Table 4 (CY, Cheongyang; HP, Hampyeong; DY, Damyang).
이 결과는 조사된 두 연도 사이의 식물상 차이가 단순한 종수 증감보다 종 교체 성분의 기여가 더 컸음을 보여준다. CY에서는 2025년 누적 종수가 감소했지만 총 비유사도의 대부분이 종 교체 성분이었고, HP와 DY에서도 누적 종수는 증가했으나 포섭 성분보다 종 교체 성분이 더 컸다. 따라서 각 조사지의 연차 간 변화는 종수의 순증감만으로는 충분히 설명되지 않았다.
연차 간 지속 여부에 따른 생활형 구성을 기술적으로 비교하였다. 총 166개의 taxon-site 기록 중 두 해 모두 출현한 기록은 76개였으며, 이 가운데 다년생은 37개(48.68%)였다. 한 해에만 출현한 기록은 90개였으며 다년생은 28개(31.11%)였다. 조사지별로도 지속 기록과 한 해 출현 기록의 다년생 비율은 각각 CY 54.55% (18/33)와 39.47%(15/38), HP 40.74%(11/27)와 25.00%(8/32), DY 50.00%(8/16)와 25.00%(5/20)로 나타났다. 동일 분류군이 여러 조사지에 중복되어 기록될 수 있고 조사지당 독립 농가가 1개소에 불과하므로, 이 차이에 대한 유의성 검정은 수행하지 않았다.
한 해에만 출현한 90개 기록 가운데 일년생은 62개(68.89%)였으며, 두 해 모두 출현한 76개 기록에서는 일년생이 39개(51.32%)였다. 이는 본 자료에서 연차 단독 출현 기록에 일년생이 상대적으로 많이 포함되어 있었음을 보여준다. 다만 본 연구는 생활형별로 종 교체 성분을 별도로 분해하지 않았으므로, 전체 종 교체가 주로 일년생에서 발생했다고 단정할 수는 없다. 예초 관리에서 지하 저장기관을 가진 식물이 재생하기 쉬운 경향은 포도원 연구에서도 보고되어 있으나(Mainardis et al., 2020), 본 연구는 종자은행, 지하기관 또는 농가별 관리 강도를 직접 측정하지 않았으므로 이러한 기작은 관측 패턴에 대한 가능한 설명으로만 제시한다.
생활형 구성의 연차 변화는 장기적 천이와 구분하여 해석할 필요가 있다. 본 조사에서 다년생 분류군의 비율은 세 조사지 모두 2025년에 다소 높았으나 변화폭은 1.41–2.25%p에 그쳤다. 2년의 관찰만으로 다년생 중심의 천이를 판단하기는 어렵다. 또한 연차 단독 출현 기록에서 일년생 비중이 높았다는 결과는 생활형에 따라 검출 지속 양상이 다를 가능성을 보여주지만, 생활형별 종 교체율을 직접 추정한 결과는 아니다. 유기 전환 이후 잡초 군락과 종자은행의 변화가 여러 해에 걸쳐 나타날 수 있다는 선행연구(Albrecht, 2005)를 고려하면, 생활형 구성의 방향성을 평가하려면 동일 농가를 장기간 반복 조사하고 관리 강도와 종자은행을 함께 측정하는 후속 연구가 필요하다. 한편 HP는 포섭 성분이 세 지역 중 가장 낮아 조성 변화가 거의 순수한 교체로 이루어졌다(Table 4). HP는 세 조사지 가운데 유일하게 무농약 전환 단계였으나, 지역당 조사 농가가 1개소이므로 이 양상을 인증 단계와 결부시켜 해석할 수는 없다. 인증 단계별 조성 동태의 차이는 농가 수를 확대한 후속 연구에서 검토되어야 한다.
세 조사지의 누적 종풍부도는 서로 달랐지만, 연차 간 총 비유사도는 0.365–0.385였고 세 조사지 모두에서 종 교체 성분이 우세하였다. 그러나 조사 대상이 3개 포도원에 불과하므로 종풍부도와 종 교체 정도의 관계를 분석하거나 두 특성의 독립성을 판단할 수는 없다. 또한 국내 과수원에서 동일한 방식으로 연차 간 베타다양성을 분해한 비교 자료가 부족하여 본 연구에서 관측된 비유사도의 상대적 크기를 평가하기 어렵다는 한계가 있다.
4. 결 론
본 연구는 친환경 전환 초기 포도원 3개소에서 2년간 식물상과 연차 간 종 조성 변화를 조사하였다. 조사된 식물상은 국화과와 벼과가 우세한 국내 농경지의 일반적 조성을 보였고, 2년 누적 귀화율은 28.71%였다. 표본 충실도에 맞추어 종풍부도를 표준화한 뒤에도 CY, HP, DY의 관측 순위는 유지되었으나, 조사지당 농가가 1개소이므로 이러한 차이의 원인을 지역 또는 관리요인으로 분리하여 해석할 수는 없다. 연차 간 Sørensen 비유사도는 세 조사지에서 0.365–0.385였으며, 각 조사지에서 종 교체 성분이 총 비유사도의 77.35–91.77%를 차지하여 포섭 성분보다 우세하였다. 또한 taxon-site 기록을 기술적으로 비교했을 때 두 해 모두 출현한 기록에서 다년생 비율이 한 해에만 출현한 기록보다 높았지만, 생활형별 종 교체율을 직접 분석한 결과는 아니므로 종 교체가 특정 생활형에서 주로 발생했다고 단정할 수 없다. 본 연구에는 관행 대조구가 없고 지역, 시설 형태, 주변 토지이용 및 인증 단계가 서로 교락되어 있으며, 농가별 관리 강도 자료도 확보하지 못하였다. 더불어 2024년의 2차 조사가 2025년보다 25–27일 늦었고 연 2회만 조사하였으므로 계절적 검출 차이가 연차 비교에 영향을 주었을 가능성을 배제할 수 없다. 따라서 본 결과는 친환경 전환의 인과적 효과가 아니라 세 전환 포도원에서 관찰된 초기 식물상과 단기 조성 변동의 기술적 기준자료로 해석해야 한다. 향후 관행 재배지를 포함한 다수 농가의 장기 반복조사와 토양, 관리 및 경관 변수의 동시 측정을 통해 전환에 따른 식생 변화를 검증할 필요가 있다.
Acknowledgments
This study was supported by the Rural Development Administration's research and development project (Project No.: PJ01745204) and the 2026 RDA Fellowship Program of the National Institute of Agricultural Sciences, Rural Development Administration, Republic of Korea.
REFERENCES
-
Albrecht, H., 2005, Development of arable weed seedbanks during the first 5 years after conversion to organic farming, Weed Res., 45(5), 339–350.
[https://doi.org/10.1111/j.1365-3180.2005.00472.x]

-
Baselga, A., 2010, Partitioning the turnover and nestedness components of beta diversity, Glob. Ecol. Biogeogr., 19(1), 134–143.
[https://doi.org/10.1111/j.1466-8238.2009.00490.x]
-
Baselga, A., Orme, C. D. L., 2012, Betapart: An R package for the study of beta diversity, Methods Ecol. Evol., 3(5), 808–812.
[https://doi.org/10.1111/j.2041-210X.2012.00224.x]
-
Bengtsson, J., Ahnström, J., Weibull, A. C., 2005, The effects of organic agriculture on biodiversity and abundance: A Meta-analysis, J. Appl. Ecol., 42(2), 261–269.
[https://doi.org/10.1111/j.1365-2664.2005.01005.x]
-
Braun-Blanquet, J., 1964, Pflanzensoziologie: Grundzüge der Vegetationskunde, 3rd ed., Springer-Verlag, Wien, Austria.
[https://doi.org/10.1007/978-3-7091-8110-2]
-
Chao, A., 1987, Estimating the population size for capture-recapture data with unequal catchability, Biometrics, 43(4), 783–791.
[https://doi.org/10.2307/2531532]
-
Chao, A., Jost, L., 2012, Coverage-based rarefaction and extrapolation: Standardizing samples by completeness rather than size, Ecology, 93(12), 2533–2547.
[https://doi.org/10.1890/11-1952.1]
-
Chao, A., Gotelli, N. J., Hsieh, T. C., Sander, E. L., Ma, K. H., Colwell, R. K., Ellison, A. M., 2014, Rarefaction and extrapolation with Hill numbers: A Framework for sampling and estimation in species diversity studies, Ecol. Monogr., 84(1), 45–67.
[https://doi.org/10.1890/13-0133.1]
-
Hole, D. G., Perkins, A. J., Wilson, J. D., Alexander, I. H., Grice, P. V., Evans, A. D., 2005, Does organic farming benefit biodiversity?, Biol. Conserv., 122(1), 113–130.
[https://doi.org/10.1016/j.biocon.2004.07.018]
-
Hsieh, T. C., Ma, K. H., Chao, A., 2016, iNEXT: An R package for rarefaction and extrapolation of species diversity (Hill numbers), Methods Ecol. Evol., 7(12), 1451–1456.
[https://doi.org/10.1111/2041-210X.12613]
-
Hurajová, E., Martínez Barroso, P., Děkanovský, I., Lumbantobing, Y. R., Jiroušek, M., Mugutdinov, A., Havel, L., Winkler, J., 2024, Biodiversity and vegetation succession in vineyards, Moravia (Czech Republic), Agriculture, 14(7), 1036.
[https://doi.org/10.3390/agriculture14071036]
-
Kim, E. J., No, J. Y., 2023, Flora changes in Gongju and Baekje weir in Geumgang River, Republic of Korea, J. Environ. Sci. Int., 32(11), 789–800.
[https://doi.org/10.5322/JESI.2023.32.11.789]
-
Kim, J. W., Lee, I. Y., Lee, J. R., 2017, Distribution of invasive alien species in Korean croplands, Weed turf. Sci., 6(2), 117–123.
[https://doi.org/10.5660/WTS.2017.6.2.117]
-
Kim, M. H., Eo, J. U., Kim, M. K., Oh, Y. J., 2020, Floristic features of upland field in South Korea, Korean J. Environ. Biol., 38(4), 528–553.
[https://doi.org/10.11626/KJEB.2020.38.4.528]
- Korea National Arboretum (KNA), 2022, A Synonymic list of vascular plants in Korea, Korea National Arboretum, Pocheon, Korea, http://www.nature.go.kr
-
Lee, C. Y., Park, J. S., Lee, H. D., Kim, E. J., Hong, E. Y., Hong, S. T., Woo, S. H., 2016, Occurrence and distribution of weeds on orchard fields in Chungbuk Province of Korea, Weed Turf. Sci., 5(2), 71–81.
[https://doi.org/10.5660/WTS.2016.5.2.71]
-
Lee, I. Y., Oh, Y. J., Hong, S. H., Heo, S. J., Lee, C. Y., Park, K. W., Cho, S. H., Kwon, O. D., Im, I. B., Kim, S. K., Seong, D. G., Chung, Y. J., Kim, C. S., Lee, J. R., Seo, H. A., 2017, Occurrence of weed flora and changes in weed vegetation in orchard fields of Korea, Weed Turf. Sci., 6(1), 21–27.
[https://doi.org/10.5660/WTS.2017.6.1.21]
-
Mainardis, M., Boscutti, F., Rubio Cebolla, M. M., Pergher, G., 2020, Comparison between flaming, mowing and tillage weed control in the vineyard: Effects on plant community, diversity and abundance, PLoS One, 15(8), e0238396.
[https://doi.org/10.1371/journal.pone.0238396]
- Ministry of Environment (MOE), 2019, Designation and notification of invasive alien (ecosystem-disturbing) species, Sejong, Korea, https://www.law.go.kr
- Park, J. E., Lee, I. Y., Park, T. S., Lim, S. T., Moon, B. C., Kim, C. S., Cho, J. R., Oh, S. M., Im, I. B., Hwang, J. B., Ku, Y. C., 2003, Occurrence characteristics of weed flora in upland field in Korea, Korean J. Weed Sci., 23(3), 277–284.
- Park, J. E., Lee, I. Y., Kim, C. S., Cho, J. R., Kang, J. G., Kim, S., Park, T. S., Im, I. B., Hwang, J. B., Song, S. B., Oh, S. M., Moon, B. C., Lim, S. T., Ji, S. H., Kang, D. S., Chung, K. I., 2005, Characteristics of weed flora and weed community on orchard field in the Korea, Korean J. Weed Sci., 25(4), 267–274.
- Park, S. H., 2009, New illustrations and photographs of naturalized plants of Korea, Ilchokak Publishing, Seoul, Korea.
- R Core Team, 2026, R: A Language and environment for statistical computing, R Foundation for Statistical Computing, Vienna, Austria, https://www.r-project.org
-
Roschewitz, I., Gabriel, D., Tscharntke, T., Thies, C., 2005, The effects of landscape complexity on arable weed species diversity in organic and conventional farming, J. Appl. Ecol., 42(5), 873–882.
[https://doi.org/10.1111/j.1365-2664.2005.01072.x]
- Sørensen, T., 1948, A Method of establishing groups of equal amplitude in plant sociology based on similarity of species content, K. Dan. Vidensk. Selsk. Biol. Skr., 5(4), 1–34.
-
Tuck, S. L., Winqvist, C., Mota, F., Ahnström, J., Turnbull, L. A., Bengtsson, J., 2014, Land-use intensity and the effects of organic farming on biodiversity: A Hierarchical meta-analysis, J. Appl. Ecol., 51(3), 746–755.
[https://doi.org/10.1111/1365-2664.12219]
-
van der Maarel, E., 1979, Transformation of cover-abundance values in phytosociology and its effects on community similarity, Vegetatio, 39(2), 97–114.
[https://doi.org/10.1007/BF00052021]
-
Winter, S., Bauer, T., Strauss, P., Kratschmer, S., Paredes, D., Popescu, D., Landa, B., Guzmán, G., Gómez, J. A., Guernion, M., Zaller, J. G., Batáry, P., 2018, Effects of vegetation management intensity on biodiversity and ecosystem services in vineyards: A Meta-analysis, J. Appl. Ecol., 55(5), 2484–2495.
[https://doi.org/10.1111/1365-2664.13124]
-
Yang, D. W., Lee, E. J., Jeong, S. A., Woo, A. Y., Nam, K. J., Han, D. U., Kim, M. H., Park, S. K., 2017, Occurrence patterns of naturalized plants by agricultural types in the Gyeonggi and Chungcheong Provinces, South Korea, Korean J. Ecol. Environ., 50(2), 254–265.
[https://doi.org/10.11614/KSL.2017.50.2.254]
- Yim, Y. J., Jeon, E. S., 1980, Distribution of naturalized plants in the Korean Peninsula, Korean J. Bot., 23(3–4), 69–83.
-
Zanin, G., Otto, S., Riello, L., Borin, M., 1997, Ecological interpretation of weed flora dynamics under different tillage systems, Agric. Ecosyst. Environ., 66(3), 177–188.
[https://doi.org/10.1016/S0167-8809(97)00081-9]
National Institute of Agricultural Sciences, RDAsupk@korea.kr
National Institute of Agricultural Sciences, RDAunok128@korea.kr
National Institute of Agricultural Sciences, RDAhongsj7@korea.kr
Institute for Future Environmental Ecology Company, Limited.cave50joo@gmail.com
National Institute of Agricultural Sciences, RDAalswogud@korea.kr