마산만 보름달물해파리(Aurelia coerulea)의 계절변동과 분포특성
Ⓒ The Korean Environmental Sciences Society. All rights reserved.
This is an Open-Access article distributed under the terms of the Creative Commons Attribution Non-Commercial License (http://creativecommons.org/licenses/by-nc/3.0) which permits unrestricted non-commercial use, distribution, and reproduction in any medium, provided the original work is properly cited.
Abstract
In this study, the seasonal population dynamics and spatial distribution of the moon jellyfish Aurelia coerulea in Masan Bay, Korea, were investigated from the initial appearance of ephyrae through medusa recruitment, growth, and subsequent seasonal decline. Monitoring of these seasonal patterns was based on 13 field surveys conducted at eight stations between February and November 2015. Ephyrae were first recorded on March 26, when the mean water temperature at the polyp habitat depth was 10.4°C, and remained present until April 29, with their distribution concentrated mainly in the inner bay area during the early occurrence period. Large medusae with bell diameters of 120–250 mm occurred at low densities from February to mid-April and were identified as overwintering medusae based on their timing and size; in addition, planulae were observed on some of these individuals until March. From late March, smaller medusae clearly distinguishable from the overwintering large individuals appeared, marking the recruitment of the current-year cohort. The coexistence of these two size groups from late March to mid-April produced a distinct bimodal size structure. Mean medusa abundance peaked at 9.83 ind. m⁻³ on April 29, decreased by approximately 58% by 22 May, and thereafter declined further to 0.23 ind. m⁻³ on June 24. However, the current-year cohort continued to grow, reaching a maximum mean bell diameter of 198 mm and wet weight of 272 g in September. The abundance-weighted center of distribution, calculated as the distance from the innermost station, shifted seaward for both ephyrae and medusae. It moved from 0.56 to 3.84 km between late March and late April for ephyrae and from 0.00 to 6.46 km between mid-February and late June for medusae, indicating a gradual seaward redistribution of the population. Overall, this seaward displacement suggests that the sharp decline in medusa abundance from May onward, despite the continued growth of the current-year cohort, is unlikely to be explained by natural mortality alone, and may have been associated with spatial redistribution and export from the bay driven by water circulation.
Keywords:
Moon jellyfish (Aurelia coerulea), Overwintering medusae, Seasonal variation, Center of distribution, Masan Bay1. 서 론
보름달물해파리속(Aurelia)은 온대에서 아열대에 이르는 연안과 내만에 널리 분포하는 대표적인 대형 해파리로, 아시아, 유럽, 북미, 오세아니아 등 여러 해역에서 반복적으로 대량 발생한다(Lucas, 2001; Mills, 2001; Purcell et al., 2007). 이들의 대량발생에는 수온 상승, 부영양화, 어류 남획에 따른 먹이망 구조 변화, 그리고 항만과 방파제 등 인공구조물 증가에 따른 폴립 부착기질의 확대 등 다양한 환경・인위적 요인이 복합적으로 작용하는 것으로 알려져 있다(Purcell et al., 2007; Dong, 2019).
이처럼 반복되는 보름달물해파리의 대량발생은 연안생태계뿐 아니라 인간의 경제활동에도 영향을 미친다. 메두사는 동물플랑크톤을 대량으로 섭식하여 그 현존량과 군집조성을 변화시키고, 그 결과 플랑크톤 먹이망의 구조와 영양단계 간 상호작용에 영향을 미칠 수 있다(Schneider and Behrends, 1998; Wang et al., 2026). 또한 어란과 자치어를 포식하거나 자치어와 먹이를 경쟁함으로써 어류자원의 가입에도 영향을 미칠 수 있다(Möller, 1980a; Lynam et al., 2005). 더불어 어업활동과 양식업을 방해하고 발전소 취수구를 막는 등 경제적 피해도 유발한다(Kim et al., 2012; Palmieri et al., 2014; Bosch-Belmar et al., 2021).
보름달물해파리속은 종간 형태가 매우 유사하여 동아시아 연안의 보름달물해파리 개체군은 과거 Aurelia aurita 또는 Aurelia sp. 1로 보고되어 왔으나(Dawson et al., 2005; Ki et al., 2008), 이후 형태 및 분자계통학적 연구를 통해 우리나라를 포함한 주요 개체군이 Aurelia coerulea에 해당하는 것으로 정리되었다(Scorrano et al., 2017; Lawley et al., 2021). 따라서 본 연구에서는 마산만 개체군을 A. coerulea로 표기하였으며, 과거 A. aurita 또는 Aurelia sp. 1로 보고된 동아시아 연구도 계절적 생태를 비교하기 위한 자료로 이용하였다.
보름달물해파리의 대량발생을 예측하고 관리하기 위해서는 개체군이 형성・성장하고 계절적으로 쇠퇴하는 과정에 대한 이해가 필요하다. 동아시아에서는 이러한 계절적 개체군 변동에 관한 연구가 일본을 중심으로 비교적 오래전부터 수행되어 왔다. 우라조코만(Urazoko Bay)에서 1960년대 후반 에피라와 메두사의 출현 및 크기조성이 조사된 이래(Yasuda, 1968, 1969, 1971), 도쿄만(Tokyo Bay)에서는 에피라의 출현부터 메두사의 성장과 월동에 이르는 개체군 변동과 폴립의 에피라 생산량이 장기간에 걸쳐 규명되었다(Omori et al., 1995; Toyokawa et al., 2000; Watanabe and Ishii, 2001). 이후 나카우미호(Lake Nakaumi)와 마이즈루만(Maizuru Bay)에서는 월동 메두사와 신규 가입군의 공존이 확인되었으며(Makabe et al., 2012; Suzuki et al., 2019), 중국에서도 스스리만(Sishili Bay)과 자오저우만(Jiaozhou Bay)을 중심으로 에피라와 메두사의 계절 출현이 조사되었다(Dong et al., 2012; Wang and Sun, 2015). 최근에는 수온 등 환경요인이 폴립의 무성생식과 에피라 생산에 미치는 영향도 연구되었다(Xing et al., 2020; Zang et al., 2022).
국내 연구는 보름달물해파리의 대량발생과 관련한 예찰・관리, 발생기작 및 생태적 영향을 중심으로 이루어져 왔다. 대량발생 예찰을 위한 음향 탐지 기법 개발(Hwang and Yoon, 2013; Shin et al., 2019), 폴립 제거를 통한 대량발생 억제(Yoon et al., 2018), 폴립의 무성생식 특성(Choi et al., 2025), 그리고 메두사의 포식압 정량화(Han et al., 2012; Han et al., 2026) 등이 그 예이다. 이에 비해 에피라 출현부터 메두사의 성장과 계절적 감소에 이르는 표영 생활사 전반의 계절 변동을 현장에서 연속적으로 다룬 개체군 연구는 시화호(Hong et al., 2013)와 거제만(Kim et al., 2024)에 국한되어, 주요 발생지인 반폐쇄성 내만의 기초자료는 여전히 부족하다.
조사 해역인 마산만은 부영양화가 진행된 대표적인 반폐쇄성 내만으로, 항만시설과 해안 인공구조물에 보름달물해파리의 폴립 군체가 형성되어 있어 지속적인 공급원이 될 수 있으며, 실제로 폴립 제거 사업의 주요 대상 해역이다(Kim, 2013; Yoon et al., 2018). 그러나 마산만에서는 이러한 계절적 개체군 변동이 연속적으로 조사된 바 없다. 이에 본 연구에서는 보름달물해파리의 에피라 출현부터 메두사의 성장과 계절적 감소에 이르는 표영 생활사 전반의 개체군 변동을 조사하였다. 특히 에피라와 메두사의 출현시기와 출현량, 메두사의 크기조성과 성장, 월동 메두사와 당해 연도 메두사의 공존을 파악하고, 생활사 단계별 시공간 분포와 출현량 가중 분포중심의 이동을 정량화하였다. 이를 통해 보름달물해파리 개체군이 계절적으로 형성되고 성장하며 공간적으로 재분포되는 과정을 규명하고, 국내 연안에서 보름달물해파리의 계절적 개체군 변동과 대량발생을 이해하기 위한 기초자료를 제공하고자 한다.
2. 재료 및 방법
2.1. 조사해역 및 해양환경
현장조사는 2015년 2월 12일부터 11월 13일까지 마산만의 8개 정점에서 월 1–2회씩 총 13회 실시하였다(Fig. 1). 조사 정점은 만 안쪽의 St. 1에서 만 바깥쪽의 St. 8 방향으로 배열하였으며, 수온과 염분은 CTD (SBE 19plus, USA)를 이용하여 각 정점의 표층부터 저층까지 연속 측정한 뒤, 1 m 간격으로 평균하여 사용하였다. 단 7월에는 선박 등 현지 사정으로 현장조사를 수행하지 못하였고, 10월 3일에는 CTD 이상으로 사용하지 못하였다. 에피라는 폴립으로부터 방출되며(Lucas, 2001), 방출의 주요 요인은 수온이다(Zang et al., 2022). 따라서 폴립의 대량 서식이 확인된 부두 외벽에 인접한 내만 정점 St. 1–3의 수심 2–4 m(Kim, 2013; Yoon et al., 2018) 수온을 별도로 평균하여 에피라 출현의 수온 범위를 추정하였다.
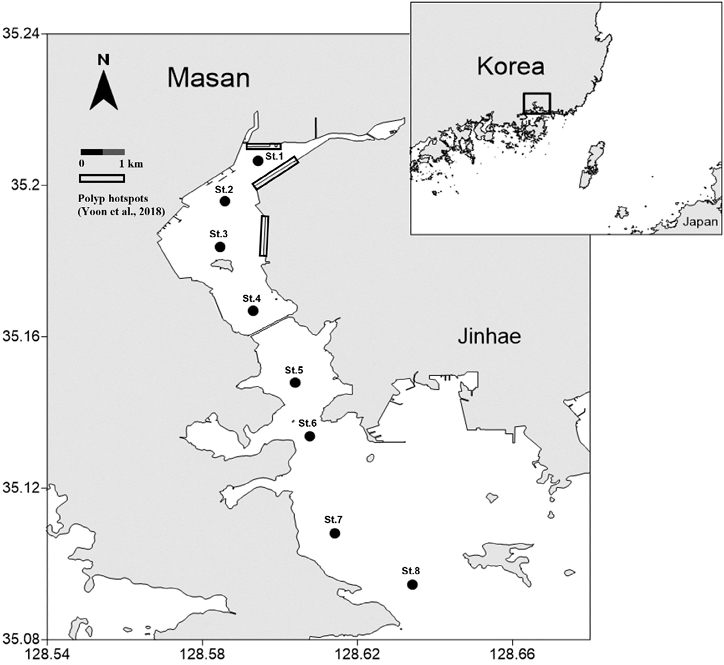
Map of stations in Masan Bay, Korea. Open rectangles denote Aurelia coerulea polyp hotspots in 2013 (Yoon et al., 2018). The scale bar represents 1 km.
2.2. 보름달물해파리의 채집, 출현량 및 크기
보름달물해파리는 유량계(General Oceanics 2030R, USA)가 부착된 원추형 플랑크톤 네트(입구 직경 60 cm, 망목 500 µm)를 이용하여 각 정점의 저층 부근부터 표층까지 약 5분 동안 경사 예망하여 채집하였다. 시료는 중성 포르말린으로 최종농도 3%가 되도록 고정하여 실험실로 운반한 뒤, 고정 직후 또는 다음 날 오전에 해부현미경(Olympus SZX, Japan)으로 분류・계수하였다. 단, 월동개체로 추정되는 대형 크기의 메두사(우산직경 ≥120 mm)와 6월 이후 채집된 메두사는 현장에서 계수하였다.
에피라의 크기 측정을 위해 조사일별로 90–140개체를 무작위로 선별하였으며, 총 345개체를 측정하였다. 에피라의 크기는 서로 반대편에 위치한 두 감각기편(rhopalial lappet) 끝 사이의 최대 직선거리인 전체 직경(total body diameter, TBD, mm)으로 나타냈다(Takauchi et al., 2021). 메두사는 채집된 일부 혹은 모든 개체의 우산직경(bell diameter, BD, mm)을 측정하였으며, 총 520개체가 분석에 포함되었다. 습중량(g)은 체표의 수분을 실험용 티슈로 가볍게 제거한 후 전자저울로 측정하였다.
2.3. 메두사 개체군 구분 및 성장률
메두사는 출현 시기와 우산직경을 기준으로 월동 메두사(overwintering medusae)와 당해 연도 메두사(current-year medusae)로 구분하였다. 2월 12일과 3월 11일에 채집된 메두사의 우산직경은 각각 120 mm 이상과 200 mm 이상이었으며, 이들 전부와 3월 26일 및 4월 13일에 채집된 우산직경 120 mm 이상의 개체는 월동 메두사로 구분하였다(Fig. 5). 반면 3월 26일과 4월 13일의 우산직경 120 mm 미만 개체와 4월 29일 이후 채집된 모든 메두사는 당해 연도 메두사로 구분하였다. 조사 초기의 대형 개체는 3월 말에 처음 확인된 에피라가 해당 크기까지 성장한 것으로 보기 어려워 월동 가능성이 있는 개체로 잠정 해석하였다(Lucas, 2001; Uye and Shimauchi, 2005; Kim et al., 2024). 다만 이 구분은 출현시기와 크기에 근거한 것으로, 개체별 월동 여부를 직접 확인한 것은 아니다.
당해 연도 메두사의 성장을 비교하기 위해 연속된 두 조사일 사이의 평균 습중량 변화로부터 개체군 수준의 일일 성장률(G, d⁻¹)을 산출하였으며, 월동 메두사는 계산에서 제외하였다.
여기서, W ₀ 와 W ₜ 는 각각 이전 조사일 t ₀ 과 다음 조사일 t 의 당해 연도 가입군의 평균 습중량(g)이다.
2.4. 출현량 가중 분포중심 분석
조사시기에 따른 에피라와 메두사 개체군의 공간분포 변화를 정량적으로 비교하기 위하여, 각 정점의 출현량을 가중치로 사용한 출현량 가중 분포중심(abundance-weighted center of distribution, C ₜ ; km)을 산정하였다. St. 1과 각 정점 간 거리는 정점 위도와 St. 1 위도의 차이에 111.195 km degree⁻¹를 곱하여 산정하였다. 조사시기별 분포중심은 각 정점의 거리와 출현량을 이용하여 다음과 같이 계산하였다.
여기서 dᵢ는 St. 1로부터 정점 i 까지의 거리(km), Aᵢ, ₜ 는 조사시기 t 에 정점 i 에서 관측된 에피라 또는 메두사의 출현량(ind. m⁻³)이다. 에피라와 메두사는 각각 독립적으로 계산하였다. C ₜ 가 증가할수록 분포 중심이 만 안쪽의 St. 1에서 만 바깥쪽의 St. 8 방향으로 이동했음을 의미한다.
3. 결 과
3.1. 수온과 염분의 계절변동
마산만의 평균 수온은 2월 6.2℃로 가장 낮았고 이후 지속적으로 상승하여 8월 5일 26.5℃로 최댓값을 나타낸 뒤 점차 낮아졌다(Fig. 2). 평균 염분은 대부분의 조사일에 약 31–33 psu 범위였으며, 8월과 9월에 다소 낮게 나타났다.
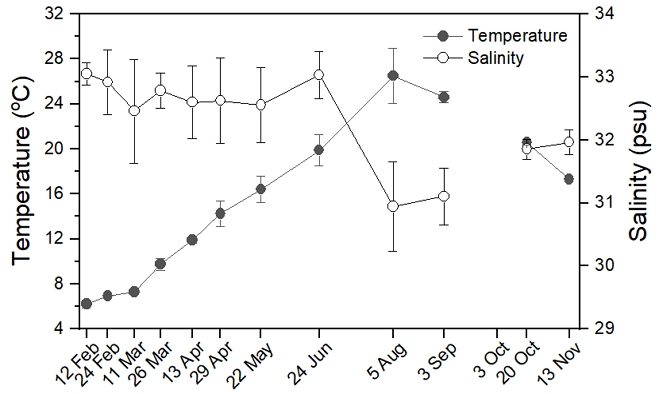
Seasonal variations of water temperature and salinity in Masan Bay. Error bars denote SD.
3.2. 에피라 출현량 및 크기 변화
에피라는 3월 26일에 처음 출현하여 4월 29일까지 출현하였으며, 출현량은 1.0–1.6 ind. m⁻³ 범위로, 첫 출현일인 3월 26일에 가장 높았다(Fig. 3A). 이 기간 중 폴립 서식 지역과 인접한 St. 1–3의 수심 2–4 m 평균 수온은 10.4–15.8℃ 범위였다(Fig. 3A). 에피라의 평균 전체 직경은 3월에 3.4 mm에서 4월 중순에 5.2 mm로 커진 뒤 4월 말에는 4.6 mm로 다소 감소하였다(Fig. 3B).
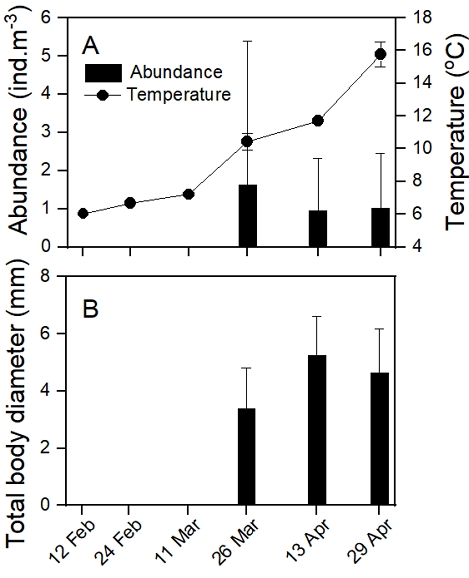
Variation in the abundance of ephyrae and the mean polyp-habitat temperature (St. 1–3, 2–4 m depth) (A), and total body diameter (TBD) of ephyrae (B). Error bars denote SD.
3.3. 메두사 개체군의 성장과 출현량 변동
메두사는 2월 24일을 제외한 조사 전 기간에 출현하였으며, 두 개의 크기 개체군으로 나뉘어 나타났다(Fig. 4). 2월부터 4월 중순까지는 우산직경 120–250 mm, 습중량 49–540 g의 대형 개체가 저밀도로 출현하였으며, 이들을 재료 및 방법에서 정의한 기준에 따라 월동 메두사로 구분하였다(Fig. 4A, Fig. 4B). 이들 월동개체에서 3월까지 플라눌라(planulae)가 관찰되었다. 반면 3월 말부터는 에피라로부터 성장한 것으로 보이는 우산직경 13 mm 내외의 소형 개체(당해 연도 메두사)가 출현하였으며, 9월에 평균 198 mm, 272 g의 최대 크기를 보이다가 이후 우산직경 및 습중량 모두 감소하였다(Fig. 4A, Fig. 4B). 두 개체군이 함께 출현한 3월 말과 4월 중순에는 우산직경 빈도분포에서 뚜렷이 구분되었다(Fig. 5).
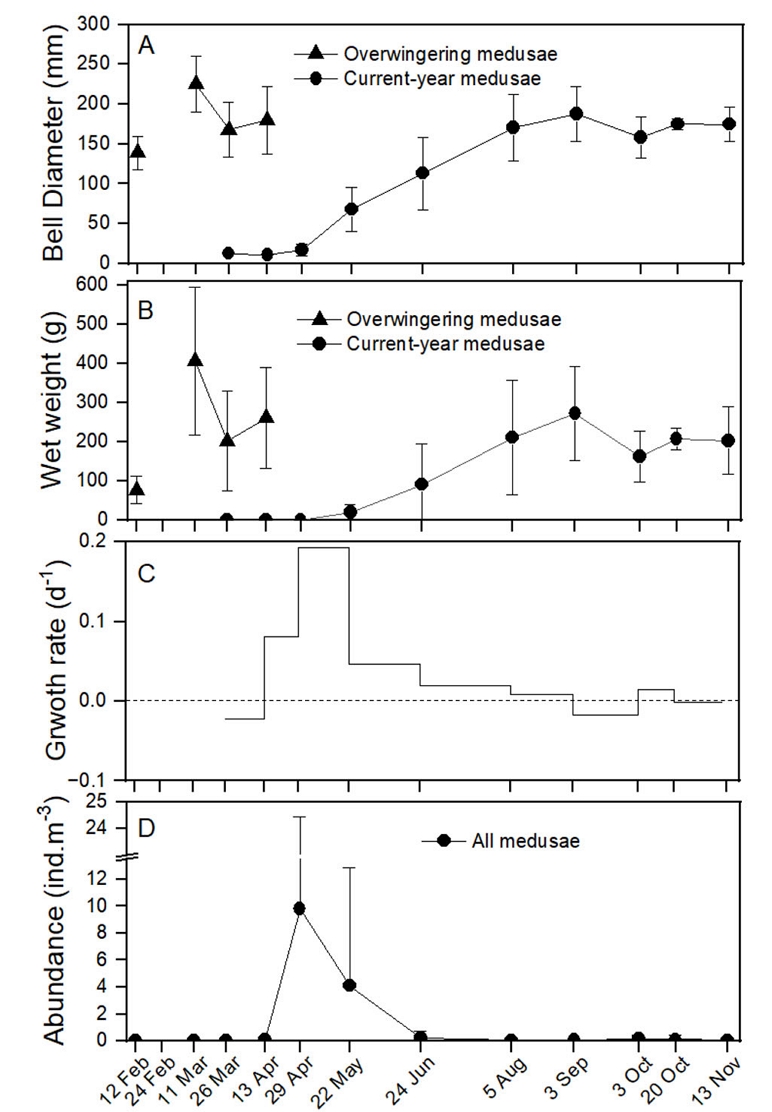
Seasonal variations in bell diameter (A), wet weight (B), daily growth rate (C), and abundance (D) of Aurelia coerulea medusae in Masan Bay. In (A) and (B), overwintering (▲) and current-year (●) medusae are shown separately. In (C), the apparent daily growth rate was calculated from changes in mean wet weight of current-year medusae. In (D), abundance represents the total of overwintering and current-year medusae. Error bars denote SD.
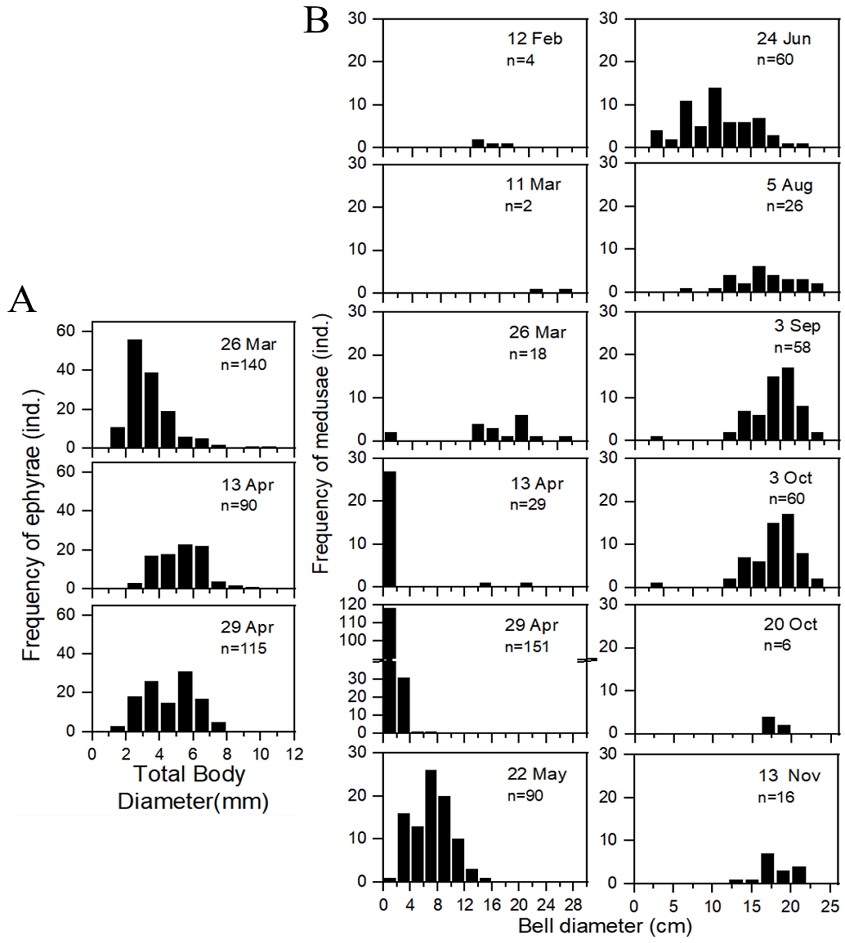
Size-frequency distribution of Aurelia coerulea ephyrae (A) and medusae (B).
4–5월의 빠른 성장 이후 6월부터 성장률이 현저히 낮아졌으며, 여름 후반에는 성장이 거의 정체되는 수준에 이르렀다(Fig. 4C). 메두사 개체군의 일일 성장률은 4월 중순부터 0.081 d⁻¹로 증가하여 4월 말–5월에 0.193 d⁻¹로 최고에 이른 뒤 지속적으로 감소하여 9월 이후에는 0에 가까워져 성장이 정체되었다.
월동개체를 포함한 메두사의 출현량은 겨울인 2월 12일부터 4월 13일 사이에 0.006–0.07 ind. m⁻³으로 매우 낮았으며, 에피라의 마지막 출현일인 4월 29일에 9.83 ind. m⁻³로 급격하게 증가하였다(Fig. 4). 이후 5월부터 4.10 ind. m⁻³로 급격히 감소하여 6월 이후에는 0.23 ind. m⁻³ 이하의 낮은 출현량만을 보였다.
3.4. 에피라와 메두사의 크기빈도 분포
에피라의 전체 직경(TBD) 빈도분포는 최초 출현일인 3월 26일과 4월 13일 사이 증가하는 추세를 보였으나 4월 13일과 마지막 출현일인 4월 29일 간에는 뚜렷한 차이를 보이지 않았다(Fig. 5A). 3월 26일에는 2–4 mm 크기가 우세하였고, 4월 13일에는 분포 중심이 4–7 mm로 이동하였으나 마지막 출현일인 4월 29일에는 3–6 mm 크기계급이 우세한 가운데 비교적 넓은 범위를 나타냈다.
메두사의 우산직경(BD) 빈도분포는 월동 메두사와 당해 연도 메두사가 공존하는 것으로 나타났다(Fig. 5B). 2월 12일과 3월 11일에는 각각 120–165 mm와 200–250 mm의 대형 개체만 확인되었다. 3월 26일부터 10 mm 안팎의 소형 개체가 출현하기 시작하여 4월 13일에는 10 mm 안팎의 소형 개체가 대부분을 차지하는 가운데 150–250 mm의 대형 개체가 함께 출현하여 이봉형(bimodal) 크기구조를 나타냈다. 이후 당해 연도 메두사가 성장함에 따라 분포 중심이 커져, 4월 말 60 mm 미만에서 5월 말에 20–100 mm로 확대되었고, 6월 이후에는 넓은 크기범위를 거쳐 9월 이후 대부분 130–220 mm에 분포하였다.
3.5. 에피라와 메두사의 시공간 분포 및 분포중심 변화
에피라의 출현량은 출현 초기 내만에 집중되었으며, 조사시기가 진행됨에 따라 주요 출현역과 출현량 가중 분포중심이 점차 만 바깥쪽으로 이동하였다(Figs. 6A and 7). 3월 26일에는 St. 1에서 최고 출현량이 관측되며 St. 1–7에 넓게 분포하였고, 4월 13일에는 St. 1–3에 집중되었으며, 4월 29일에는 St. 4에서 최대값을 나타내면서 St. 1–6에 분포하였다. 이에 따라 출현량 가중 분포중심은 3월 26일 0.56 km에서 4월 29일 3.84 km로 증가하여 만 바깥쪽(St. 8 방향)으로 이동하였다(Fig. 7).
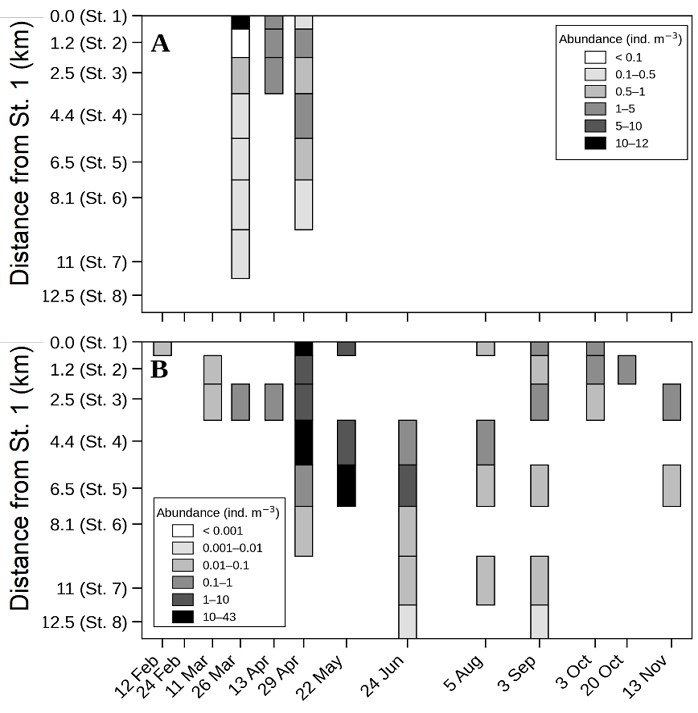
Spatiotemporal distribution of Aurelia coerulea ephyrae (A) and medusae (B) in Masan Bay. Abundance classes are indicated by grayscale. Blank cells denote zero abundance or no record for the corresponding life-history stage.
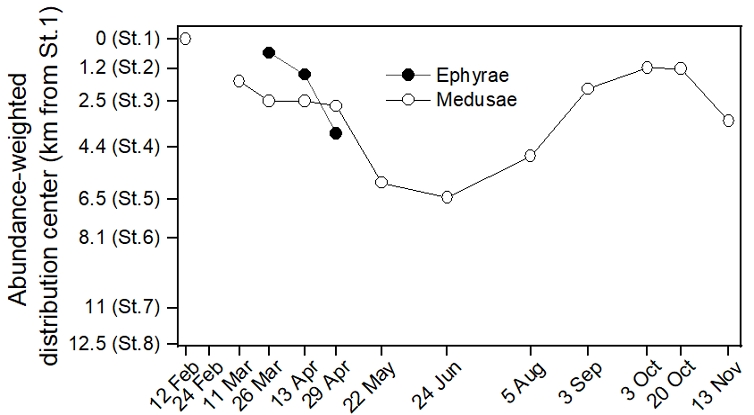
Seasonal variations in the abundance-weighted center of distribution of Aurelia coerulea ephyrae and medusae, expressed as distance from St. 1. Values were not calculated when total abundance was zero.
메두사 역시 출현 초기 내만에 국한되었다가 당해 연도 개체군의 성장기에 만 바깥쪽으로 확장되었다(Fig. 6B). 2–4월에는 주로 St. 1–3에 분포하였고, 4월 29일 St. 4에서 42.93 ind. m⁻³, 5월 22일 St. 5에서 27.09 ind. m⁻³로 높은 밀도를 보였으며, 6월 24일에는 St. 4–8에 걸쳐 분포하였다. 이에 따라 분포중심은 2월 0.00 km에서 6월 24일 6.46 km까지 만 바깥쪽으로 이동한 뒤, 여름・가을에 걸쳐 다시 내만 쪽(10월 20일 1.20 km)으로 이동하였다(Fig. 7). 11월 13일에는 3.34 km로 증가하였으나 이 시기의 전체 출현량은 낮았다.
4. 고 찰
4.1. 에피라의 출현과 수온
본 조사에서 마산만의 에피라는 3월 하순부터 4월 하순까지 출현하였으며, 이 시기 폴립 서식수심의 수온은 약 10–16°C로 상승기에 있었다(Fig. 3). 온대 해역에서 에피라의 출현시기와 수온은 지역에 따라 차이를 보이지만, 출현은 대체로 겨울철 저수온기를 지나 수온이 상승하기 시작하는 늦겨울–초봄에 집중된다. 일본에서는 가고시마만(Kagoshima Bay)에서 에피라가 1월 초부터 3월 중순에 출현하였고(Miyake et al., 1997), 우라조코만에서는 1월 중순부터 6월 하순까지 표층 수온 8–22°C 범위에서 출현하였으며, 4월에 최대 출현량을 보였다(Yasuda, 1968). 도쿄만에서는 1988–1992년 조사에서 에피라가 주로 12–4월에 관찰되어 2–3월에 최대 출현량을 보였고(Toyokawa et al., 2000), 1990–1992년의 약 3년의 조사에서도 에피라 방출이 12–2월에 정점을 이루었다(Omori et al., 1995). 또한 도쿄만 내만에서 에피라의 생존과 생산을 직접 추적한 연구에서도 주요 출현기는 2–4월에 집중되었다(Ishii et al., 2004). 각 조사에서 확인된 주요 출현기는 모두 연중 최저 수온기를 지나 수온이 상승하기 시작하는 시기에 해당한다(Omori et al., 1995). 중국에서도 유사한 양상이 확인된다. 자오저우만에서는 2011년 조사에서 에피라가 5–6월에 출현하여 5월에 최대를 보였으며, 이 시기의 수온은 12–18°C로 상승기에 있었다(Wang and Sun, 2015). 유럽에서도 에피라의 출현은 주로 겨울부터 봄에 관찰되며, 출현 시 수온은 위도와 해역에 따라 차이를 보인다(Lucas, 2001). 킬만(Kiel Bight)에서는 에피라가 12–4월에 약 5°C에서, 케르팅에노르(Kertinge Nor)에서는 2–4월에 3.5–6.4°C에서, 사우샘프턴 수로(Southampton Water)에서는 1–3월에 2.6–8.7°C에서 출현하였다. 아열대 해역인 타이완 타퐁만(Tapong Bay)에서도 에피라는 주로 겨울부터 봄에 해당하는 저수온기에 출현하였으며, 이후 수온이 상승하면서 메두사 단계로 성장하였다(Lo and Chen, 2008). 이처럼 에피라가 출현하는 절대 수온은 해역에 따라 차이를 보이지만, 많은 온대 및 아열대 개체군에서 주요 출현은 겨울부터 봄 사이에 집중된다. 이것은 폴립이 수온 상승과 플랑크톤 대발생으로 인해 먹이생물이 증가하는 봄철에 에피라를 방출함으로써 생존율과 성장률을 높여 메두사의 개체군을 최대화하려는 보름달물해파리의 생활사 전략으로 이해되며, 마산만에서 약 10–16°C의 수온 상승기에 집중된 에피라 출현 역시 이러한 계절적 생활사 전략을 따른다고 볼 수 있다.
4.2. 월동 메두사 개체군과 당해 연도 가입군의 공존
마산만에서는 당해 연도 에피라가 처음 확인되기 이전인 2월부터 120–250 mm의 대형 메두사가 출현하였고, 3월 26일과 4월 13일에는 이 대형군과 7–17 mm의 소형 당해 연도 메두사가 동시에 관찰되었다(Fig. 5). 두 조사일의 크기 빈도분포에서는 두 집단 사이의 크기계급이 거의 비어 있어 뚜렷한 이봉형 크기구조를 나타냈다. 당해 연도 에피라가 3월 말에 처음 확인되었다는 점과 같은 시기에 이미 120 mm 이상의 대형 개체가 존재하였다는 점을 고려하면, 이 대형군을 당해 연도 메두사의 성장 단계로 설명하기는 어렵다. 따라서 본 연구에서는 이들을 전년도에 가입한 후 겨울을 넘겨 생존한 월동 메두사로 구분하였다.
보름달물해파리의 월동 메두사는 일본을 비롯한 여러 온대 해역에서 보고되어 왔다. 우라조코만에서는 월별 우산크기 조성을 근거로 장기간 생존하는 메두사가 보고되었으며(Yasuda, 1971), 도쿄만에서는 봄철에 출현한 대형 메두사의 크기빈도를 근거로 월동 개체로 해석되었다(Toyokawa et al., 2000). 나카우미호의 혼조수역(Honjo Area)에서도 3월까지 평균 우산직경 11.3–11.9 cm의 월동 메두사가 존재하였으며, 4월에는 1–5 cm의 신규 메두사가 가입하였다. 이후 월동군이 5월 말 소멸할 때까지 두 집단이 뚜렷한 이봉형 크기분포를 유지하였다(Makabe et al., 2012). 더불어 마이즈루만에서도 겨울을 생존한 메두사가 확인되었다(Suzuki et al., 2019). 따라서 마산만에서 확인된 대형군은 계절적 출현시기와 크기빈도에 근거하여 서로 다른 코호트를 구분한 기존 Aurelia 개체군 연구와 일치한다.
특히 본 조사에서 월동 메두사에서 플라눌라가 관찰되었다는 점은 이들이 단순히 겨울에 생존한 잔존 개체에 그치지 않고 겨울부터 이른 봄까지 유성생식에 참여하고 있었음을 보여준다. 도쿄만에서도 겨울을 생존한 대형 메두사가 생식상태를 유지하였으며, 겨울철에도 플라눌라 보유 개체가 관찰되었다(Toyokawa et al., 2000). 마이즈루만에서도 월동 메두사가 이듬해 봄까지 생식에 기여하였다(Suzuki et al., 2019). 따라서 월동 메두사는 출현량 자체가 낮더라도 플라눌라를 공급함으로써 새로운 폴립의 가입에 기여할 수 있으며, 전년도 표영 개체군과 이후 저서생활사 단계를 연결하는 생태적 역할을 할 가능성이 있다.
국내에서는 보름달물해파리의 계절적 개체군 변동에 관한 현장연구가 제한되어 있어 월동 메두사의 존재가 명확하게 구분되어 보고된 사례는 드물다. 시화호에서 수행된 Hong et al.(2013)의 조사는 2009년 4월부터 10월까지 이루어져 그 이전의 겨울철 메두사 생존 여부를 직접 평가하기 어려웠다. 한편 국립수산과학원은 본 조사가 수행된 2015년 겨울 득량만과 마산만에서 보름달물해파리가 겨울을 지나 생존・성숙한 현상을 국내 최초로 확인하였고, 당시 이러한 월동과 성숙은 그해 겨울 수온이 이전 4년에 비해 약 1°C 높게 유지된 것과 관련된 것으로 추정되었다(NIFS, 2015). 이는 겨울 수온이 월동 여부를 좌우한다는 기존 보고와도 일치한다(Suzuki et al., 2019). 본 연구의 출현시기와 크기빈도 자료는 당시 마산만에서 확인된 월동 현상을 정량적으로 뒷받침하며, 월동 메두사에서 확인된 플라눌라는 이들이 생식활동을 지속하고 있었음을 보여준다. 이후 거제만에서도 월동 개체군과 당해 연도 개체군이 구분되어 보고되었다(Kim et al., 2024). 이상의 결과는 국내 연안의 보름달물해파리 개체군이 매년 표영단계가 완전히 소멸한 후 새로운 에피라 가입으로만 시작되는 단순한 단년 생활사만을 갖는 것이 아니라, 일부 성체가 겨울을 생존하여 이듬해까지 생식에 참여할 수 있음을 보여준다.
4.3. 당해 연도 가입군의 성장과 출현량 변동
일반적으로 온대 해역의 Aurelia 개체군의 계절변동은 겨울부터 봄 사이에 폴립으로부터 방출된 에피라가 성장하여 소형 메두사로 가입하고, 이후 메두사가 성장・성숙하여 생식한 뒤 계절 후반에 출현량이 감소하는 것으로 보고되어 왔다(Lucas, 2001; Marques et al., 2015; Wang and Sun, 2015). 마산만에서도 에피라는 3월 말부터 4월 말까지 출현하였으며, 3월 말부터 소형 메두사가 확인되어 당해 연도 메두사의 가입이 시작되었다(Figs. 3 and 4D). 이후 전체 메두사의 평균 출현량은 4월 말에 9.83 ind. m⁻³로 최대에 도달하였다. 따라서 에피라의 출현에서 당해 연도 메두사의 가입과 개체군 증가에 이르는 봄철 초기의 변동은 다른 온대 해역에서 보고된 일반적인 계절적 양상과 유사하였다.
그러나 메두사 가입 이후 출현량이 감소하기 시작한 시기는 동아시아의 여러 해역에서 보고된 계절변동과 상당한 차이를 보였다. 마산만에서는 전체 메두사의 평균 출현량이 4월 말 최대에 도달한 후 5월 말까지 약 58% 감소하였으며, 6월 말에는 0.23 ind. m⁻³까지 낮아져 5월부터 이미 뚜렷하게 감소하였다(Fig. 4D). 이에 비해 도쿄만에서는 여름철 성장과 생식 이후 가을에 퇴화 개체가 증가하면서 출현량이 감소하였고(Toyokawa et al., 2000), 자오저우만에서도 7월까지 성장한 후 8월에 퇴화 개체가 증가하고 9월부터 출현량이 낮아졌다(Wang and Sun, 2015). 일본 혼조수역(Honjo Area)에서는 메두사가 6–11월의 온난기에 풍부하게 출현하였으며(Han et al., 2009), 후속 연구에서도 출현량이 6월에 최대에 도달한 후 8월 이후 낮은 수준으로 감소하였다(Makabe et al., 2012). 거제만에서는 출현량이 4월에 가장 높았으나 당해 연도 개체군은 이후에도 성장하여 10월까지 지속되었다(Kim et al., 2024). 따라서 마산만에서 5월부터 나타난 급격한 출현량 감소는 이들 동아시아 해역에서 관찰된 계절변동과 비교하여 이른 시기에 시작되었다.
보름달물해파리는 산란 이후 우산직경이 감소하는 퇴화(reduction)가 관찰되어 왔으며(Möller, 1980b; Omori et al., 1995), 산란과 관련된 위사(gastric filaments)의 소실과 이에 따른 섭식・소화 기능의 저하가 이후의 쇠퇴와 사망으로 이어질 수 있다(Spangenberg, 1965). 그러나 마산만에서는 출현량이 급감한 4월 말부터 6월까지 당해 연도 가입 메두사가 높은 양의 일일 성장률을 보이며 지속적으로 성장하였으므로(Fig. 4C), 이 시기의 감소를 생식 이후의 퇴화와 자연사망만으로 설명하기는 어렵다.
이러한 결과는 마산만의 메두사 출현량 감소에 생물학적 쇠퇴뿐 아니라 외부의 물리적 요인도 함께 관여하였을 가능성을 시사한다. 도쿄만에서도 가을철 메두사 개체군의 감소는 퇴화 개체의 증가뿐 아니라 북풍과 강수 증가에 따른 내만 상층수의 외측 유출과 관련되었으며, 이에 따라 상당수의 메두사가 만 밖으로 수송되었을 가능성이 제시되었다(Toyokawa et al., 2000). 마산만에서도 4월 말 이후 메두사의 출현량이 급격히 감소하는 동안 개체군의 분포중심은 지속적으로 만 외측으로 이동하였다. 따라서 마산만에서 나타난 이른 출현량 감소에는 생식 이후의 생리적 쇠퇴와 자연사뿐 아니라 해수유동에 따른 만 외측으로의 재분포와 유출이 함께 관여하였을 가능성이 있다. 이러한 공간적 재분포와 해수유동의 영향은 다음 절에서 상세히 논의하고자 한다.
4.4. 생활사 진행에 따른 공간분포의 재분포
생활사가 진행되면서 보름달물해파리 개체군의 분포중심은 내측에서 외측으로 이동하였다(Figs. 6 and 7). 에피라의 출현량 가중 분포중심은 3월 26일 0.56 km에서 4월 29일 3.84 km로 이동하였고, 메두사의 분포중심도 2월 12일 0.00 km에서 5월 22일 5.84 km, 6월 24일 6.46 km로 점차 외측으로 이동하였다. 최대 출현정점에서도 유사한 변화가 나타나, 에피라는 St. 1에서 St. 3과 St. 4로, 메두사는 4월 말 St. 4에서 5월 말 St. 5로 주요 출현역이 변화하였다.
이러한 에피라 공간분포의 초기 형성은 폴립 서식처의 위치와 관련된 것으로 판단된다. 마산만에서는 보름달물해파리 폴립이 항만 등의 인공구조물에 고밀도로 서식하는 것으로 알려져 있으며, 국내에서 실제 폴립 제거도 마산만을 포함한 주요 폴립 서식지에서 수행된 바 있다(Yoon et al., 2018). 일본 미카와만(Mikawa Bay)에서는 만 전역의 75개 정점에서 에피라의 분포를 조사한 결과 에피라가 주로 어항에서 채집되었고, 특히 만 입구의 섬 주변에서 높은 출현량을 보였다. 또한 이 지역의 부잔교 하부에서는 고밀도의 폴립 군체가 확인되어 에피라의 초기 분포와 폴립 서식처 사이의 공간적 연관성이 제시되었다(Toyokawa et al., 2011). 따라서 본 연구에서 출현 초기의 에피라가 St. 1을 비롯한 내만에 집중된 것도 내만에 분포하는 폴립 서식처에서 방출된 에피라의 공간적 공급과 관련되었을 가능성이 높다.
그러나 에피라가 처음 공급된 해역과 이후 메두사의 주요 분포역이 반드시 동일하게 유지되는 것은 아니다. 미카와만에서도 메두사의 주요 분포역은 계절에 따라 변화하여, 2008년에는 5월부터 7월 사이에 서부에서 동부로 분포역이 이동하였다(Aoki et al., 2012). 이러한 결과는 폴립 서식처에 의해 형성된 초기 분포가 이후에도 그대로 유지되는 것이 아니라, 표영 생활사가 진행되는 동안 개체군의 주요 분포역이 변화할 수 있음을 보여준다.
마산만에서 이러한 분포변화를 유발할 수 있는 중요한 요인으로는 해수유동에 의한 수송과 재분포를 고려할 수 있다. Choi et al.(2016)은 마산만에 3차원 해수유동모델과 입자추적모델을 적용하여 마산항, 중공업단지 및 가포신항에서 발생한 입자의 이동과 집적을 모의하였다. 그 결과 잔차류의 다방향성 흐름과 지형적 영향에 의해 마창대교 북측에서 높은 입자 집적이 나타났으며, 조석잔차류・취송류・밀도류의 영향을 분리한 수치실험에서는 특히 마창대교와 모도 부근에서 취송류가 입자 집적에 크게 기여하였다. 이러한 결과는 내만에서 공급된 해파리의 공간분포가 잔차류와 취송류 등의 해수유동에 의해 변화할 수 있다는 기작적 근거를 제공한다. 따라서 마산만의 해파리 분포는 단순히 내측에서 외측으로 이동하는 과정만으로 설명하기보다는, 해수유동에 의한 수송・확산과 특정 해역에서의 체류・집적이 동시에 작용하여 형성되는 것으로 보는 것이 적절하다.
해수유동이 해파리의 분포와 집적을 형성할 수 있다는 점은 다른 해역의 현장연구에서도 확인되었다. 일본 호케즈만(Hokezu Bay)에서는 항공사진과 49개의 표류부이를 이용하여 보름달물해파리 패치와 주변 유동장을 동시에 조사한 결과, 표류부이가 약 1시간 이내에 수평 수렴역으로 집적되었으며, 해파리 패치의 형성에는 이류와 수평 수렴과 같은 수동적 과정이 크게 관여하였다(Magome et al., 2007). 그러나 해파리의 분포를 해수유동만으로 설명할 수 있는 것은 아니다. Magome et al.(2007)은 패치의 형성이 수영과 이류의 조합에 의해 이루어진다고 보았으며, 캐나다 사니치 내만(Saanich Inlet)에서는 맑은 날 보름달물해파리가 태양의 위치를 이용한 방향성 수평유영을 하는 현상이 관찰되어 능동적 유영이 개체군의 국지적 체류에 기여할 수 있음이 제시되었다(Hamner et al., 1994). 따라서 해수유동은 해파리 개체군의 광역적인 수송과 집적에 중요한 역할을 하는 반면, 메두사의 능동적 유영은 특정 해역에서의 국지적인 체류와 집적을 조절할 수 있는 것으로 판단된다.
한편 마산만은 도시와 인접한 내만으로 강우에 따른 담수 유입이 해수유동에 영향을 줄 수 있다. 실제로 4월 29일에는 조사 당일 창원관측소에서 30.5 mm의 강우가 기록되었고, 이날 평균 염분은 30.9로 조사기간 중 가장 낮았으며 정점 및 수심 간 편차도 뚜렷하게 컸다(KMA, 2015). 그러나 그 밖의 조사일에는 대부분 당일 강수가 없었고 염분도 32–33으로 안정적이었으며, 5월 이후의 출현량 감소와 분포중심의 외측 이동은 강우가 없었던 조사일에도 지속되었다. 따라서 담수 유입은 특정 시기에 국지적인 영향을 주었을 수 있으나, 본 연구에서 관찰된 계절적 분포 변화를 주도한 요인으로 보기는 어렵다.
이상으로 본 연구에서 관찰된 에피라와 메두사의 내측에서 외측 방향으로의 순차적인 분포중심 변화는 내만의 폴립 서식처에서 공급된 개체군이 표영 생활사를 거치는 동안 마산만의 해수유동에 지속적으로 노출되면서 외측으로 수송・재분포되었을 가능성을 시사한다(Aoki et al., 2012; Choi et al., 2016). 특히 이러한 외측으로의 분포 변화가 메두사 출현량이 급격히 감소한 시기와 함께 나타났다는 점은, 마산만에서 5월 이후 관찰된 출현량 감소에 자연사망 외에 만 외측으로의 재분포와 유출이 크게 관여하였을 가능성을 뒷받침한다. 한편 여름 이후 분포중심이 다시 내측으로 이동한 것은 앞선 시기에 외측으로 분포한 개체의 일부가 만 외부로 유출되거나 사라짐에 따라 내만에 잔존한 개체의 상대적 비중이 증가한 결과일 가능성이 있다.
5. 결 론
2015년 마산만에서 3월 말부터 보름달물해파리 에피라가 출현하였으며, 이후 당해 연도 가입군이 형성・성장하여 4월 말에 높은 출현량을 나타냈다. 조사 초기에는 대형 월동 메두사가 저밀도로 출현하여 당해 연도 가입군과 일시적으로 공존하였으며, 에피라와 메두사의 분포중심은 생활사 진행에 따라 내만에서 만 바깥쪽으로 이동하였다. 이후 개체군 감소기에는 외측의 개체들이 감소하고 내만에 잔존한 저밀도 개체들의 상대적 기여가 커지면서 분포중심이 다시 내만 쪽에 형성되었다. 이러한 결과는 마산만 보름달물해파리의 계절적 개체군 변동과 공간적 분포 변화가 밀접하게 연계되어 있음을 보여준다.
Acknowledgments
본 연구는 2026년도 국립수산과학원 수산시험연구사업 「동해 연안어업 및 환경생태조사(R202609)」의 지원으로 수행되었습니다.
REFERENCES
- Aoki, K., Yamada, S., Toyokawa, M., Yasuda, A., Kikuchi, T., 2012, Horizontal distribution and growth of jellyfish, Aurelia aurita (Linnaeus 1758) sensu lato, in Mikawa Bay, Japan, Coast. Mar. Sci., 35(1), 103-111.
-
Bosch-Belmar, M., Milisenda, G., Basso, L., Doyle, T. K., Leone, A., Piraino, S., 2021, Jellyfish impacts on marine aquaculture and fisheries, Rev. Fish. Sci. Aquac., 29, 242-259.
[https://doi.org/10.1080/23308249.2020.1806201]

-
Choi, M. H., Ryu, T. G., Kim, D. S., 2016, A study of distribution of jellyfish by particle numerical experiment in Masan Bay, J. Korean Soc. Mar. Environ. Saf., 22(4), 335-343.
[https://doi.org/10.7837/kosomes.2016.22.4.335]
-
Choi, S. Y., Kim, K. Y., Youn, S. H., 2025, Feeding and growth in the ephyra stage of Aurelia coerulea: An in situ study, Biology, 14(6), 687.
[https://doi.org/10.3390/biology14060687]
-
Dawson, M. N., Gupta, A. S., England, M. H., 2005, Coupled biophysical global ocean model and molecular genetic analyses identify multiple introductions of cryptogenic species, Proc. Natl. Acad. Sci. USA, 102(34), 11968-11973.
[https://doi.org/10.1073/pnas.0503811102]
-
Dong, Z., Liu, D., Wang, Y., Di, B., Song, X., Shi, Y., 2012, A Report on a moon jellyfish Aurelia aurita bloom in Sishili Bay, northern Yellow Sea of China in 2009, Aquat. Ecosyst. Health Manag., 15(2), 161-167.
[https://doi.org/10.1080/14634988.2012.689583]
-
Dong, Z., 2019, Blooms of the moon jellyfish Aurelia: Causes, consequences and controls, in: Sheppard, C. (ed.), World Seas: An Environmental Evaluation, vol. III, 2nd ed., Academic Press, London, 163-171.
[https://doi.org/10.1016/B978-0-12-805052-1.00008-5]
-
Hamner, W. M., Hamner, P. P., Strand, S. W., 1994, Sun-compass migration by Aurelia aurita (Scyphozoa): Population retention and reproduction in Saanich Inlet, British Columbia, Mar. Biol., 119, 347-356.
[https://doi.org/10.1007/BF00347531]
-
Han, C. H., Kawahara, M., Uye, S. I., 2009, Seasonal variations in the trophic relationship between the scyphomedusa Aurelia aurita s.l. and mesozooplankton in a eutrophic brackish-water lake, Japan, Plankton Benthos Res., 4(1), 14-22.
[https://doi.org/10.3800/pbr.4.14]
-
Han, C. H., Chae, J., Jin, J., Yoon, W., 2012, Estimation of the minimum food requirement using the respiration rate of medusa of Aurelia aurita in Sihwa Lake, Ocean Sci. J., 47, 155-160.
[https://doi.org/10.1007/s12601-012-0015-5]
-
Han, C. H., Chae, J., Lee, S. J., 2026, Population ingestion rate of Aurelia coerulea on mesozooplankton in Masan Bay, Korea, Water, 18(13), 1585.
[https://doi.org/10.3390/w18131585]
-
Hong, H. P., Han, C. H., Yoo, J. K., 2013, Population dynamics of jellyfish Aurelia aurita (s.l.) in Sihwa Lake, Ocean Polar Res., 35(3), 205-217.
[https://doi.org/10.4217/OPR.2013.35.3.205]
-
Hwang, D. J., Yoon, E. A., 2013, An Estimation of the sound-speed and density of moon jellyfish (Aurelia aurita) in Korean waters, J. Korean Soc. Fish. Ocean Technol., 49(4), 483-491.
[https://doi.org/10.3796/KSFT.2013.49.4.483]
- Ishii, H., Kojima, S., Tanaka, Y., 2004, Survivorship and production of Aurelia aurita ephyrae in the innermost part of Tokyo Bay, Japan, Plankton Biol. Ecol., 51(1), 26-35, https://www.plankton.jp/PBE/issue/vol51_1/vol51_1_026.pdf
-
Ki, J. S., Hwang, D. S., Shin, K., Yoon, W. D., Lim, D., Kang, Y. S., Lee, Y., Lee, J. S., 2008, Recent moon jelly (Aurelia sp. 1) blooms in Korean coastal waters suggest global expansion: Examples inferred from mitochondrial COI and nuclear ITS-5.8S rDNA sequences, ICES J. Mar. Sci., 65(3), 443-452.
[https://doi.org/10.1093/icesjms/fsn018]
-
Kim, D. H., Seo, J. N., Yoon, W. D., Suh, Y. S., 2012, Estimating the economic damage caused by jellyfish to fisheries in Korea, Fish. Sci., 78(5), 1147-1152.
[https://doi.org/10.1007/s12562-012-0533-1]
-
Kim, K. Y., Youn, S. H., Choi, S. Y., Park, W., 2024, Massive outbreak of Aurelia coerulea in Geoje Bay, Korea, Water, 16(19), 2846.
[https://doi.org/10.3390/w16192846]
- Kim, T. G., 2013, Improvement and restoration of marine ecosystem habitat functions: Jellyfish polyp removal, Final Report, Publication Registration No. 11-1192000-000072-10, Korea Marine Environment Management Corporation, Seoul, Korea, https://www.meis.go.kr/mes/data/5/board.do
- KMA (Korea Meteorological Administration), 2015, Open MET Data Portal, https://data.kma.go.kr
-
Lawley, J. W., Gamero-Mora, E., Maronna, M. M., Chiaverano, L. M., Stampar, S. N., Hopcroft, R. R., Collins, A. G., Morandini, A. C., 2021, The importance of molecular characters when morphological variability hinders diagnosability: Systematics of the moon jellyfish genus Aurelia (Cnidaria: Scyphozoa), PeerJ, 9, e11954.
[https://doi.org/10.7717/peerj.11954]
-
Lo, W. T., Chen, I. L., 2008, Population succession and feeding of scyphomedusae, Aurelia aurita, in a eutrophic tropical lagoon in Taiwan, Estuar. Coast. Shelf Sci., 76(2), 227-238.
[https://doi.org/10.1016/j.ecss.2007.07.015]
-
Lucas, C. H., 2001, Reproduction and life history strategies of the common jellyfish, Aurelia aurita, in relation to its ambient environment, Hydrobiologia, 451, 229-246.
[https://doi.org/10.1007/978-94-010-0722-1_19]
-
Lynam, C. P., Heath, M. R., Hay, S. J., Brierley, A. S., 2005, Evidence for impacts by jellyfish on North Sea herring recruitment, Mar. Ecol. Prog. Ser., 298, 157-167.
[https://doi.org/10.3354/meps298157]
-
Magome, S., Yamashita, T., Kohama, T., Kaneda, A., Hayami, Y., Takahashi, S., Takeoka, H., 2007, Jellyfish patch formation investigated by aerial photography and drifter experiment, J. Oceanogr., 63, 761-773.
[https://doi.org/10.1007/s10872-007-0065-y]
-
Makabe, R., Kurihara, T., Uye, S. I., 2012, Spatio-temporal distribution and seasonal population dynamics of the jellyfish Aurelia aurita s.l. studied with Dual-frequency IDentification SONar (DIDSON), J. Plankton Res., 34, 936-950.
[https://doi.org/10.1093/plankt/fbs057]
-
Marques, R., Albouy-Boyer, S., Delpy, F., Carré, C., Le Floc’h, E., Roques, C., Molinero, J. C., Bonnet, D., 2015, Pelagic population dynamics of Aurelia sp. in French Mediterranean lagoons, J. Plankton Res., 37(5), 1019-1035.
[https://doi.org/10.1093/plankt/fbv059]
-
Mills, C. E., 2001, Jellyfish blooms: Are populations increasing globally in response to changing ocean conditions?, Hydrobiologia, 451, 55-68.
[https://doi.org/10.1007/978-94-010-0722-1_6]
- Miyake, H., Iwao, K., Kakinuma, Y., 1997, Life history and environment of Aurelia aurita, South Pac. Stud., 17(2), 273-285.
- Möller, H., 1980a, Scyphomedusae as predators and food competitors of larval fish, Meeresforschung, 28(2-3), 90-100, https://eurekamag.com/research/006/370/006370119.php
-
Möller, H., 1980b, Population dynamics of Aurelia aurita medusae in Kiel Bight, Germany (FRG), Mar. Biol., 60, 123-128.
[https://doi.org/10.1007/BF00389155]
- NIFS (National Institute of Fisheries Science), 2015, First confirmation of overwintering of moon jellyfish in Korean waters, Press release, 25 February 2015, National Institute of Fisheries Science, Busan, Korea, https://www.nifs.go.kr
-
Omori, M., Ishii, H., Fujinaga, A., 1995, Life history strategy of Aurelia aurita (Cnidaria, Scyphomedusae) and its impact on the zooplankton community of Tokyo Bay, ICES J. Mar. Sci., 52(3-4), 597-603.
[https://doi.org/10.1016/1054-3139(95)80074-3]
-
Palmieri, M. G., Barausse, A., Luisetti, T., Turner, K., 2014, Jellyfish blooms in the northern Adriatic Sea: Fishermen’s perceptions and economic impacts on fisheries, Fish. Res., 155, 51-58.
[https://doi.org/10.1016/j.fishres.2014.02.021]
-
Purcell, J. E., Uye, S. I., Lo, W. T., 2007, Anthropogenic causes of jellyfish blooms and their direct consequences for humans: A Review, Mar. Ecol. Prog. Ser., 350, 153-174.
[https://doi.org/10.3354/meps07093]
-
Schneider, G., Behrends, G., 1998, Top-down control in a neritic plankton system by Aurelia aurita medusae: A Summary, Ophelia, 48(2), 71-82.
[https://doi.org/10.1080/00785236.1998.10428677]
-
Scorrano, S., Aglieri, G., Boero, F., Dawson, M. N., Piraino, S., 2017, Unmasking Aurelia species in the Mediterranean Sea: An Integrative morphometric and molecular approach, Zool. J. Linn. Soc., 180, 243-267.
[https://doi.org/10.1111/zoj.12494]
- Shin, H. H., Han, I., Oh, W., Chae, J., Yoon, E., Lee, K., 2019, Estimation of moon jellyfish Aurelia coerulea using hydroacoustic methods off the coast of Tongyeong, Korea, Korean J. Fish. Aquat. Sci., 52(6), 725-734.
-
Spangenberg, D. B., 1965, Cultivation of the life stages of Aurelia aurita under controlled conditions, J. Exp. Zool., 159, 303-318.
[https://doi.org/10.1002/jez.1401590303]
-
Suzuki, K. S., Suzuki, K. W., Kumakura, E., Sato, K., Oe, Y., Sato, T., Sawada, H., Masuda, R., Nogata, Y., 2019, Seasonal alternation of the ontogenetic development of the moon jellyfish Aurelia coerulea in Maizuru Bay, Japan, PLoS One, 14(11), e0225513.
[https://doi.org/10.1371/journal.pone.0225513]
-
Takauchi, S., Miyake, H., Hirata, N., Nagai, M., Suzuki, N., Ogiso, S., Ikeguchi, S., 2021, Morphological characteristics of ephyrae of Aurelia coerulea derived from planula strobilation, Fish. Sci., 87, 671-679.
[https://doi.org/10.1007/s12562-021-01541-6]
- Toyokawa, M., Furota, T., Terazaki, M., 2000, Life history and seasonal abundance of Aurelia aurita medusae in Tokyo Bay, Japan, Plankton Biol. Ecol., 47(1), 48-58.
-
Toyokawa, M., Aoki, K., Yamada, S., Yasuda, A., Murata, Y., Kikuchi, T., 2011, Distribution of ephyrae and polyps of jellyfish Aurelia aurita (Linnaeus 1758) sensu lato in Mikawa Bay, Japan, J. Oceanogr., 67(2), 209-218.
[https://doi.org/10.1007/s10872-011-0021-8]
-
Uye, S., Shimauchi, H., 2005, Population biomass, feeding, respiration and growth rates, and carbon budget of the scyphomedusa Aurelia aurita in the Inland Sea of Japan, J. Plankton Res., 27(3), 237-248.
[https://doi.org/10.1093/plankt/fbh172]
-
Wang, P., Zhang, F., Xin, X., Wang, S., Sun, S., 2026, Jellyfish blooms restructure plankton dynamics and trophic linkages in coastal waters, Funct. Ecol., 40, 1443-1460.
[https://doi.org/10.1111/1365-2435.70307]
-
Wang, Y. T., Sun, S., 2015, Population dynamics of Aurelia sp. 1 ephyrae and medusae in Jiaozhou Bay, China, Hydrobiologia, 754(1), 147-155.
[https://doi.org/10.1007/s10750-014-2021-3]
-
Watanabe, T., Ishii, H., 2001, In situ estimation of ephyrae liberated from polyps of Aurelia aurita using settling plates in Tokyo Bay, Japan, Hydrobiologia, 451, 247-258.
[https://doi.org/10.1007/978-94-010-0722-1_20]
-
Xing, Y., Liu, Q., Zhang, M., Zhen, Y., Mi, T., Yu, Z., 2020, Effects of temperature and salinity on the asexual reproduction of Aurelia coerulea polyps, J. Oceanol. Limnol., 38(1), 133-142.
[https://doi.org/10.1007/s00343-019-8337-0]
-
Yasuda, T., 1968, Ecological studies on the jelly-fish, Aurelia aurita, in Urazoko Bay, Fukui Prefecture-II. Occurrence pattern of the ephyra, Nippon Suisan Gakkaishi, 34(11), 983-987.
[https://doi.org/10.2331/suisan.34.983]
-
Yasuda, T., 1969, Ecological studies on the jelly-fish, Aurelia aurita, in Urazoko Bay, Fukui Prefecture-I. Occurrence pattern of the medusa, Nippon Suisan Gakkaishi, 35, 1-6.
[https://doi.org/10.2331/suisan.35.1]
-
Yasuda, T., 1971, Ecological studies on the jelly-fish, Aurelia aurita, in Urazoko Bay, Fukui Prefecture-IV. Monthly change in the bell-length composition and breeding season, Nippon Suisan Gakkaishi, 37(5), 364-370.
[https://doi.org/10.2331/suisan.37.364]
-
Yoon, W., Chae, J., Koh, B. S., Han, C., 2018, Polyp removal of a bloom-forming jellyfish, Aurelia coerulea, in Korean waters and its value evaluation, Ocean Sci. J., 53, 499-507.
[https://doi.org/10.1007/s12601-018-0015-1]
-
Zang, W., Zhang, F., Chi, X., Sun, S., 2022, Relationship between asexual reproduction of Aurelia coerulea polyps and jellyfish blooms under the influence of temperature dynamics in winter and spring, Front. Mar. Sci., 9, 888656.
[https://doi.org/10.3389/fmars.2022.888656]
Fisheries Resources and Environment Research Division, East Sea Fisheries Research Institutehanch@korea.kr
Climate Change Research Division, National Institute of Fisheries Science (retired).pandalus97@gmail.com